Лайнус Полінг, Пітер Полінг — Хімія
У 1902 р. англійський лікар А. Е. Гарод (1857—1936) досліджував хворих, у яких сеча темніла від стояння на повітрі, і виявив, що зміна кольору спричинена присутністю в сечі гомогентизинової кислоти, або 2,5-дигідроксифенілоцтової кислоти. Він описав це явище як «вроджену помилку обміну речовин». Пізніше було встановлено, що це результат генетичної мутації: фермент, який перетворює гомогентизинову кислоту в тілі здорової людини на інші речовини, у хворих або не синтезується зовсім, або, можливо, синтезується в зміненій формі, що не має каталітичної активності. У 1949 р. було відкрито причину іншої генетичної хвороби — серпоподібноклітинної анемії, яка зумовлена присутністю в організмі мутантного гена, що детермінує синтез аномального поліпептидного ланцюга гемоглобіну. У β-ланцюзі молекули гемоглобіну у хворих на серпоподібноклітинну анемію відбувається заміна одного амінокислотного залишку глутамінової кислоти на валін, що вже було описано в підрозд. 15.6. Оскільки поява аномальних молекул гемоглобіну спричиняє хворобу, серпоподібноклітинну анемію було названо молекулярною хворобою. Від 1949 р. виявлено сотні молекулярних хвороб. Для багатьох із них установлено природу генної мутації та відповідну зміну в структурі молекули білка, залежного від мутованого гена. Для ряду таких хвороб виявлення порушення на молекулярному рівні дало змогу практично повністю пояснити симптоми захворювання.
Прикладом молекулярної хвороби, причина якої нині цілком зрозуміла, може бути ферригемоглобінемія. Це захворювання пов'язане з тим, що в аномальній молекулі гемоглобіну два атоми із чотирьох атомів Феруму(II) легко окиснюються до стану Феруму(III), тоді як два інші атоми залишаються в двозарядному стані. Сполучення гемоглобіну з молекулами кисню в легенях та їх вивільнення в тканинах може відбуватися лише за умови, що атом Феруму двозарядний. Якщо атоми Феруму окиснюються до тризарядного стану, втрачається здатність оборотно сполучатися з киснем, і кров хворого має вдвічі меншу кисневу місткість, ніж кров здорової людини.
Насамперед необхідно пояснити, чому сполуки Феруму(II) стійкі в нормальному гемоглобіні. Більшість сполук, що містять Ферум(II), легко окиснюються киснем повітря до відповідних сполук Феруму(III), але нормальний гемоглобін стійкий до такого окиснення, якщо молекула гемоглобіну не денатурована. Розшифрування структури міоглобіну та гемоглобіну методом рентгеноструктурного аналізу дало змогу пояснити специфічну стійкість Феруму(II) у гемоглобіні. Було виявлено, що в положенні 58 α-ланцюга гемоглобіну та в положенні 63 β-ланцюга міститься залишок амінокислоти гістидину, причому його імідазольне кільце жорстко закріплене поблизу атома Феруму гем-групи. Імідазольне кільце має властивості основи і при нормальному pH (близько 7) притягує протон із розчину, утворюючи іон імідазолію C3N2H4+ або C₃N₂H₅⁺ (на думку редакції сайту) (рис. 15.29). Позитивний електричний заряд цього іона утворює електростатичне поле поблизу атома Феруму, внаслідок чого відповідно знижується здатність атома Феруму(II) віддавати електрон і перетворюватися на атом Феруму(III). Цим електростатичним ефектом іона імідазолію й пояснюється незвичайна стійкість атома Феруму(II) у нормальному гемоглобіні.
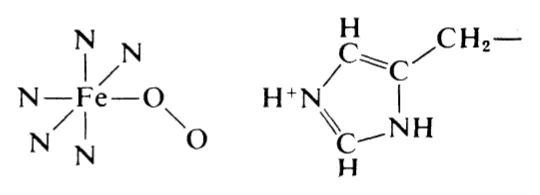
Рис. 15.29. Взаємне розташування іона імідазолію залишку гістидину та атома Феруму в гемоглобіні. Позитивний заряд імідазолію зберігає іон Fe2+.
У людини існує, однак, кілька відомих мутацій, що змінюють амінокислотну послідовність в α-ланцюгу або в β-ланцюгу гемоглобіну так, що легкість, з якою окиснюється атом Феруму, зростає, внаслідок чого й розвивається ферригемоглобінемія. Одна з таких мутацій призводить до заміни залишку гістидину в положенні 58 α-ланцюга на залишок тирозину. Бічний ланцюг тирозину містить оксибензольне кільце, яке, маючи властивості кислоти, не притягує протона й не набуває позитивного заряду. Електростатичне поле, що утримує електрон Феруму, у цьому випадку не утворюється, і Ферум(II) гем-груп у двох ланцюгах молекули гемоглобіну окиснюється до Феруму(III). Захворювання, що виникає, називають ферригемоглобінемією за α-ланцюгами.
Відома також ферригемоглобінемія за β-ланцюгами, за якої тирозин заміщує гістидиновий залишок у положенні 63 β-ланцюга.
Ці дані про характер заміщення амінокислот в α- або в β-ланцюгу дали змогу пояснити природу хвороби, яка виявляється в тому, що атоми Феруму(II) набувають здатності окиснюватися до стану Феруму(III). Розкриття молекулярних причин хвороби дає можливість розробити методи, що запобігають її прояву. Якщо яким-небудь способом внести позитивний заряд у відповідну частину молекули гемоглобіну й тим самим знизити можливість переходу атома Феруму(II) у стан Феруму(III), то розвиток хвороби можна попередити. Інший шлях, що дає змогу впливати на перебіг хвороби, не потребує детального знання її молекулярного механізму, а ґрунтується на врахуванні того факту, що захворювання пов'язане з окисненням атома Феруму. Тоді, підвищуючи концентрацію в крові якого-небудь відновника, наприклад аскорбінової кислоти (вітаміну C), можна змінити окисно-відновні умови в організмі так, щоб вони сприяли відновленню Феруму(III) до Феруму(II).
Викладені вище міркування були підтверджені даними, отриманими під час вивчення іншої молекулярної аномалії. Якщо залишок гістидину в положенні 58 α-ланцюга або в положенні 63 β-ланцюга заміщується залишком аргініну, то розвивається інша, менш небезпечна за своїми проявами хвороба. Аномалія в цьому випадку не призводить до ферригемоглобінемії — атоми Феруму залишаються двозарядними. Причина тут у тому, що бічний ланцюг аргініну містить гуанідинову групу, яка при pH 7 захоплює протон і перетворюється на іон гуанідинію, що несе позитивний заряд. Електростатичне поле, яке він створює, утримує атом Феруму в стані Феруму(II).
Молекулярні хвороби відкрито лише приблизно 25 років тому, і з кожним роком тонкі молекулярні механізми, що лежать в їх основі, стають дедалі зрозумілішими. Подальші дослідження в цьому напрямі мають привести до значних успіхів у боротьбі з хворобами, а отже, й до зменшення страждань людини.
Вправи
15.1. Яку відстань займає один амінокислотний залишок уздовж осі α-спіралі? Уздовж поліпептидного ланцюга в структурі типу паралельного складчастого шару? Використовуючи ці цифри, розрахуйте, наскільки збільшується довжина волосини при її розтягуванні після обробки парою або відновником.
15.2. Чому волосина після обробки відновником розтягується легше, ніж до обробки?
15.3. Які особливості структури шовку шовковичного шовкопряда Bombyx mori пов'язані з тим фактом, що половину амінокислотних залишків цього шовку становлять залишки гліцину?
15.4. Поясніть, чому структури типу складчастого шару можуть бути побудовані лише з L- або лише з D-амінокислотних залишків, але не із суміші тих і других?
15.5. Накресліть схему структури саркомера й поясніть, як відбувається скорочення м'язового волокна.
15.6. У підрозд. 15.4 сказано, що ефективна киснева місткість гемоглобіну з незалежно функціонуючими гемами (парціальний тиск кисню в легенях 0,15 атм, у тканинах — 0,04) становить лише 32% максимальної.
а) Перевірте це, використовуючи рівняння рівноваги.
б) Яка ефективна киснева місткість гемоглобіну у випадку дуже сильної гем-гем-взаємодії? [Відповідь: 87%.]
в) Чому такий гемоглобін не знайдено в природі?
15.7. Яке значення з фізіологічної точки зору має той факт, що міоглобін досягає 50% насичення киснем при меншому парціальному тиску кисню, ніж гемоглобін? (Див. рис. 15.12.)
15.8. Які експериментальні дані дають змогу зробити висновок, що в молекулі антитіла є два зв'язувальні ділянки, кожна з яких здатна сполучатися з гаптеновою групою?
15.9. Якщо розчин овальбуміну додати до відповідної антисироватки (від кролика, якому вводили овальбумін), то утворюється осад. Якщо продовжувати додавати розчин овальбуміну, осад розчиниться. Чи можна пояснити ці факти?
15.10. На рис. 15.19 показано іон сукцинанілату, причому ланцюг сукцинату зігнутий, а не витягнутий на максимально можливу довжину. Така зігнута конформація підтверджується такими даними: іон анілату малеїнової кислоти сполучається з антитілом до сукцинанілату значно міцніше, ніж іон анілату фумарової кислоти. (Анілат малеїнової кислоти C6H5NHCOCH=CHCO2− має цис-конфігурацію біля подвійного зв'язку, а його ізомер — анілат фумарової кислоти — транс-конфігурацію.) Чи можна аргументувати ці дані?
15.11. Чаргафф установив, що ДНК різних організмів містить різні кількості чотирьох нуклеотидів A, T, G і C, але в кожній ДНК завжди кількість A дорівнює T, а кількість G дорівнює C. Як пояснити цей факт?
15.12. Чому експеримент Мезельсона і Шталя свідчив на користь існування подвійної спіралі та постульованого механізму реплікації генів?
15.13. Відстані між атомами кисню й азоту, зв'язаними водневими зв'язками в комплементарних парах основ ДНК (див. рис. 15.20), дорівнюють 280—300 пм. Енергія водневого зв'язку зменшується вдвічі при збільшенні відстані на кожні 20 пм. Наскільки ван-дер-ваальсів контакт між двома центральними NH-групами розсуває основи в нестабільній парі GT (порівняно з комплементарними парами)? Наскільки слабшим у цьому випадку буде водневий зв'язок? (Відповідь: приблизно на 100 пм.)
15.14. Опишіть структуру біологічної мембрани.
15.15. Чому ферригемоглобінемія виникає при заміщенні залишку гістидину в положенні 58 α-ланцюга або в положенні 63 β-ланцюга гемоглобіну на залишок тирозину? Чому ця хвороба не розвивається при заміні гістидину аргініном?