Лайнус Полінг, Пітер Полінг — Хімія
Перше майже вичерпне встановлення структури глобулярного білка було здійснено англійським ученим Дж. Кендрю (народився 1917 р.) та його численними співробітниками в період з 1946 по 1960 р. Вони одержали й розшифрували рентгенограми кристалічного міоглобіну кашалота. Міоглобін, присутній у скелетних м'язах, є білком, подібним до гемоглобіну, але на відміну від нього молекула міоглобіну складається лише з одного поліпептидного ланцюга (близько 150 амінокислотних залишків, молекулярна маса близько 17 000) і містить одну групу гему (підрозд. 13.7). Рентгеноструктурне дослідження кристалів гемоглобіну, проведене англійським ученим Максом Перуцем (нар. 1914 р.) та його співробітниками, показало, що молекула гемоглобіну являє собою агрегат із чотирьох субодиниць, кожна з яких за будовою досить близька до міоглобіну.
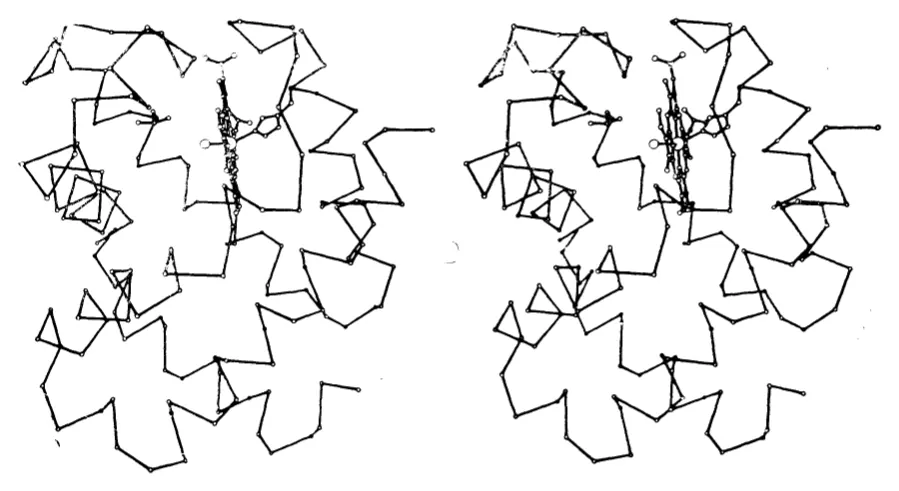
Рис. 15.11. Стереоскопічне зображення просторової конфігурації молекули гемоглобіну кільчастого черв'яка Glycera.
Кружки, що відповідають положенню α-атомів Карбону, з'єднані прямими відрізками. Показано також положення гем-групи.
[From Padlan E. A., Love W. E., J. Biolog. Chem., 249, 4067 (1974).]
Вторинні структури міоглобіну та гемоглобіну представлені головним чином α-спіралями. Вісім відрізків поліпептидного ланцюга є відносно прямолінійними α-спіралями; ці відрізки містять 80% амінокислотних залишків усього ланцюга, решта 20% залишків припадають на місця згинів, що сполучають між собою α-спіральні відрізки. При укладанні ланцюга (третинна структура) утворюється порожнина, в якій розташована гем-група.
Наближене уявлення про таку структуру дає рис. 15.11, який відтворює просторову модель молекули гемоглобіну, виділеного з кільчастого черв'яка класу поліхет (Glycera dibranchiata). Кожна пептидна група CCONHC позначена прямим відрізком, що з'єднує два кружки, які відповідають положенню в просторі α-атомів Карбону, які належать 150 або 146 амінокислотним залишкам. На рисунку чітко видно кілька ділянок α-спіралі. Атом Феруму, показаний більшим кружком у центрі майже плоскої гем-групи, утворює шість зв'язків: чотири з атомами Нітрогену гем-групи, один з атомом Нітрогену імідазольного кільця бічного ланцюга гістидину (залишок № 90, рахуючи від вільного NH2-кінця поліпептидного ланцюга) і один з атомом Оксигену, що належить молекулі кисню, яку зв'язує гемоглобін (кружок ліворуч від площини гему), або з атомом Карбону молекули карбон(II) оксиду.
α- і β-Ланцюги гемоглобіну
Методом, розробленим Сенгером (підрозд. 14.3), було виявлено, що молекула гемоглобіну ссавців містить чотири поліпептидні ланцюги, до кожного з яких приєднана гем-група. У більшості ссавців гемоглобіни мають ланцюги двох типів (які називають α- і β-ланцюгами), по два ланцюги кожного типу в молекулі. У нормальному гемоглобіні дорослої людини α-ланцюги побудовані зі 140 амінокислотних залишків, β-ланцюги — із 146. В інших ссавців число амінокислотних залишків у ланцюгах майже таке саме. Послідовність амінокислотних залишків повністю відома для поліпептидних ланцюгів нормального гемоглобіну людини, для багатьох аномальних гемоглобінів людини (див. підрозд. 15.8) і для гемоглобінів багатьох видів тварин. Послідовність перших кількох залишків у ланцюгах нормального гемоглобіну дорослої людини така:
| Положення | 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 | 9 | 10 | 11 | 12 | |
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| α-Ланцюг | H2N— | Val | Leu | Ser | Pro | Ala | Asp | Lys | Thr | Asn | Val | Lys | Ala |
| β-Ланцюг | H2N— | Val | His | Leu | Thr | Pro | Glu | Glu | Lys | Ser | Ala | Val | Thr |
Первинна структура обох типів ланцюгів досить близька — приблизно половину одних і тих самих місць у ланцюгах займають однакові залишки (зверніть увагу на випадіння гістидину між положеннями 1 і 2 в α-ланцюгу). Молекули гемоглобінів деяких безхребетних складаються з ланцюга лише одного типу.
Рівноважна взаємодія гемоглобіну з киснем. Алостеричні структури білків
Молекула гемоглобіну людини, подібно до гемоглобіну інших ссавців, складається з чотирьох поліпептидних ланцюгів (кожний з яких містить одну гем-групу) і здатна оборотно приєднувати чотири молекули кисню. Уже багато років тому було показано, що рівноважне зв'язування кисню гемоглобіном описується S-подібною кривою, наведеною на рис. 15.12, яка відрізняється від аналогічної кривої для міоглобіну. Для міоглобіну, що містить одну гем-групу в молекулі, слід очікувати криву рівноваги, яка відповідає реакції
Mb + O2 ⇄ MbO2
Константа рівноваги цієї реакції
$$\frac{[\mathrm{MbO_2}]}{[\mathrm{Mb}]\,p_{\mathrm{O_2}}} = K$$
або
$$\text{Частка оксигенованих молекул Mb} = \frac{[\mathrm{MbO_2}]}{[\mathrm{Mb}]+[\mathrm{MbO_2}]} = \frac{K p_{\mathrm{O_2}}}{1 + K p_{\mathrm{O_2}}}.$$
Експериментальні дані добре узгоджуються з цим рівнянням.
Якщо чотири гем-групи молекули гемоглобіну зв'язують кисень незалежно одна від одної, це рівняння має бути справедливе і для гемоглобіну. Проте S-подібна крива, що її спостерігають, показує, що між гем-групами існує взаємодія — зв'язування молекули кисню з однією гем-групою призводить до зміни інших груп так, що їхня константа рівноважного зв'язування кисню зростає.
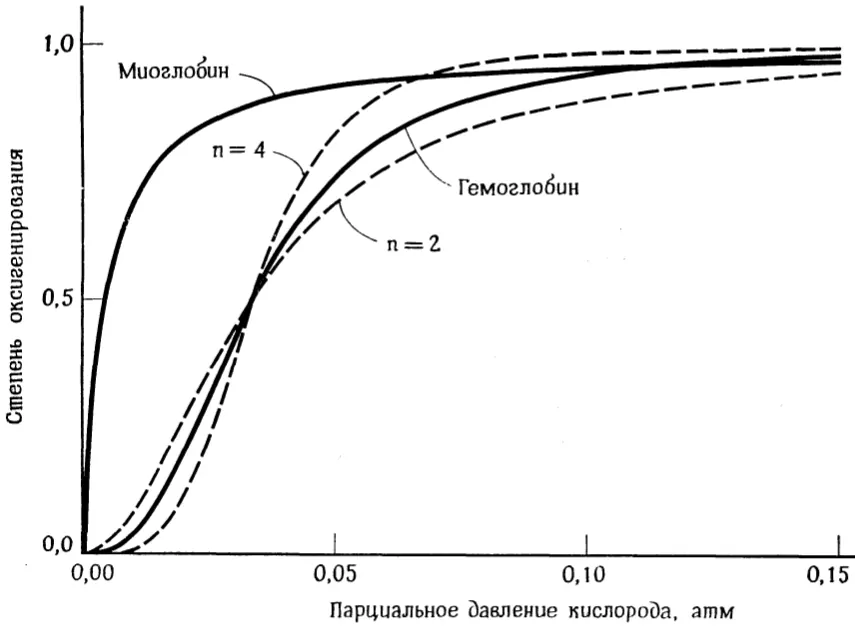
Рис. 15.12. Експериментальні криві (——) залежності ступеня оксигенування міоглобіну та гемоглобіну від парціального тиску кисню і теоретичні криві (– – –) для одночасного приєднання двох або чотирьох молекул кисню (дуже сильні гем-гем-взаємодії).
Одне з можливих пояснень цього явища полягає в тому, що внаслідок сильної взаємодії між гем-групами проміжні продукти в інтервалі між Hb4 і Hb4(O2)4 у помітних концентраціях не утворюються (тут Hb — субодиниця гемоглобіну з однією гем-групою). Рівновага для реакції
Hb4 + 4O2 ⇄ Hb4(O2)4
виражається рівнянням
$$\frac{[\mathrm{Hb_4(O_2)_4}]}{[\mathrm{Hb_4}]} = K'\,p_{\mathrm{O_2}}^4.$$
Крива, що відповідає цьому співвідношенню, наведена на рис. 15.12. Проте вона не збігається з експериментальною кривою, і, отже, припущення про дуже сильну гем-гем-взаємодію помилкове.
Інше просте пояснення полягає в допущенні, що сильна взаємодія між гем-групами здійснюється попарно, а самі пари між собою не взаємодіють. Тоді відповідне рівняння рівноваги
$$\frac{[\mathrm{Hb_2(O_2)_2}]}{[\mathrm{Hb_2}]} = K''\,p_{\mathrm{O_2}}^2$$
дає криву, також наведену на рис. 15.12. Проте й ця крива має менш виражену S-подібну форму, ніж експериментальна, і, отже, теж не відображає реальний процес.
Добра відповідність з експериментом виходить у тому випадку, якщо припустити, що гем-група, яка приєднала кисень (HbO2), підвищує константу зв'язування кисню у 12 разів на кожну сусідню групу і що гем-групи розташовані по кутах квадрата. Фактор 12 узгоджується з енергією взаємодії між гем-групами: RT ln 12 = 6 кДж·моль−1.
У молекулі гемоглобіну гем-групи розташовані далеко одна від одної (3000 пм), тому прямої взаємодії між ними недостатньо, щоб пояснити це явище. Проте було знайдено, що приєднання кисню або іншого ліганда змінює форму згорнутого поліпептидного ланцюга, і завдяки взаємодії між сусідніми ланцюгами цей ефект передається.
Перші дані, що свідчать про те, що ліганд, сполучений з гемом міоглобіну чи гемоглобіну, втиснутий у порожнину молекули, було одержано при вивченні зв'язування гемом алкілізоціанідів (RNC, де R — етил, ізопропіл або трет-бутил). У ряді —CH2CH3, —CH(CH3)2 і —C(CH3)3 об'єм групи послідовно зростає. Ці групи сполучаються із Ферумом гему, причому значення констант їх зв'язування дуже близькі: так, міцність зв'язку Fe—CNR не залежить від розміру алкільної групи. Проте при сполученні із Ферумом гем-групи, що перебуває у складі молекули міоглобіну чи гемоглобіну, значення констант зв'язування зменшуються зі збільшенням розміру алкільної групи (для кожної наступної метильної групи, що заміщує Гідроген, приблизно в 14 разів). Це, ймовірно, пояснюється тим, що більші молекули ліганда повинні зазнавати більших просторових утруднень при досягненні гему, розташованого в порожнині молекули міоглобіну, або одного з гемів у складній молекулі гемоглобіну. Таке впровадження ліганда крізь надто вузьку для нього щілину може здійснитися, якщо щілина розшириться внаслідок зміни структури молекули. Про те, що така зміна структури молекули відбувається при оксигенуванні гемоглобіну, свідчить і той факт, що кристали оксигенованої форми гемоглобіну людини відрізняються від кристалів гемоглобіну, який не несе кисню (це справедливо й для гемоглобінів інших біологічних видів). Якби при сполученні гемоглобіну з киснем структура молекули не змінювалася, то й кристалічні форми були б однаковими.
Чотири субодиниці гемоглобіну утримуються разом унаслідок слабкої взаємодії між комплементарними поверхнями (див. підрозд. 15.5 і рис. 15.13, на якому показано лише дві субодиниці з чотирьох). Комплементарність частково порушується при зв'язуванні однієї молекули кисню й знову відновлюється при зв'язуванні другої молекули кисню. Різницею в енергії взаємодії між комплементарними поверхнями пояснюється менше значення константи зв'язування для першої молекули кисню та більше — для другої.
Цей механізм дуже вигідний для організму, оскільки він підвищує кисневу ємність крові, яка доставляє кисень від легень до тканин. У легенях парціальний тиск кисню становить близько 0,15 атм, тобто він дещо нижчий, ніж у повітрі, яке вдихають. При такому тиску гемоглобін оксигенований приблизно на 95%; у тканинах, де парціальний тиск становить близько 0,04 атм, гемоглобін оксигенований на 20%*. Таким чином, ефективна ємність гемоглобіну становить 75% від максимально можливої, тоді як для незалежних гемів вона дорівнює лише 32%.
Зміна конформації поліпептидних ланцюгів гемоглобіну при зв'язуванні кисню — приклад так званої алостерії. Відомі алостеричні форми й в інших білків, переважно в ферментів. Алостерія є механізмом, за допомогою якого різні властивості великої білкової молекули можуть змінюватися при її сполученні з малою молекулою. Для гемоглобіну значення цього явища полягає в тому, що воно пов'язане з взаємодією гемів між собою; характер цих взаємодій і виражає S-подібна крива рівноваги реакції гемоглобіну з киснем.
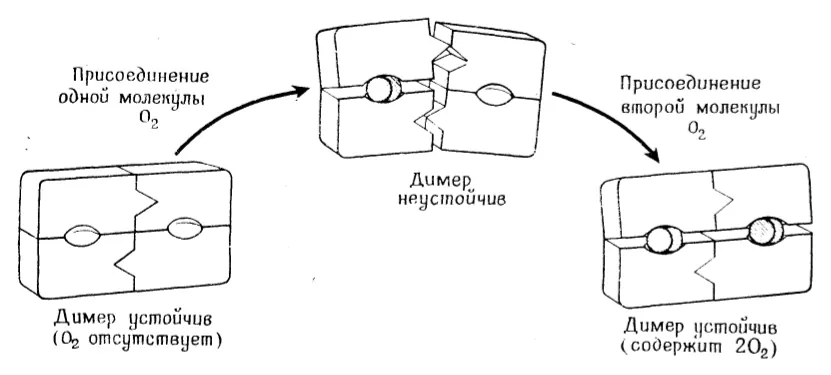
Рис. 15.13. Алостерична гем-гем-взаємодія в димері.
* Насправді парціальний тиск кисню в тканинах дещо вищий за 0,04 атм, і виділенню кисню гемоглобіном сприяє підкислення крові карбон(IV) оксидом, що надходить із тканин.
Ферменти й інші глобулярні білки
Рентгеноструктурний аналіз кристалів дав змогу встановити повну просторову структуру низки глобулярних білків. Було показано, що вторинна структура цих білків представлена головним чином α-спіраллю й двома типами складчастого шару. За допомогою рентгеноструктурного аналізу можна встановити й положення каталітично активного центру в молекулі ферменту, сполученого з інгібітором.
Багато ферментів, що каталізують окисно-відновні реакції, містять атоми Феруму. Прикладом можуть бути цитохроми, присутні в кожному живому організмі. Вони містять гем-групи, пов'язані з білком інакше, ніж у молекулах міоглобіну та гемоглобіну. Цікавим є білок, що містить негемовий Ферум (так званий високопотенціальний залізовмісний білок), виділений із клітин кількох видів пурпурних бактерій. Він може оборотно одноступінчасто (шляхом втрати одного електрона) окиснюватися іоном гексаціаноферат(III) кислоти [Fe(CN)6]3− та іншими окисниками і, ймовірно, каталізує якісь окисні процеси, важливі для фізіології бактерій. На рисунку, де наведено просторову структуру цього білка (рис. 15.14), видно короткі ділянки α-спіралі та пару ділянок з антипаралельними ланцюгами типу складчастого шару. У середині молекули міститься група з чотирьох атомів Феруму (●) і восьми атомів Сульфуру (○). Чотири атоми Феруму розташовані в несуміжних кутах куба, а чотири атоми Сульфуру дещо висунуті назовні від чотирьох інших кутів куба. Решта чотири атоми Сульфуру розташовані радіально щодо атомів Феруму. Зовнішні атоми Сульфуру належать цистеїновим залишкам, що займають положення 43, 46, 63 і 77 у поліпептидному ланцюгу, який складається з 85 амінокислотних залишків. Атоми Гідрогену в кожній сульфгідрильній групі цистеїну заміщені Ферумом. Взаємодію атома Fe(III) у цій групі з навколишніми атомами можна уявити таким чином: єдиний ковалентний зв'язок він утворює з одним зі суміжних атомів Сульфуру цистеїну, а на три інші атоми Сульфуру припадає по 2/3 зв'язку (тобто два ковалентні зв'язки резонують між трьома положеннями). Подібне тетраедричне розташування чотирьох атомів Сульфуру навколо атома Феруму виявлено також у деяких сульфідних мінералів, наприклад у халькопіриту (CuFeS2).
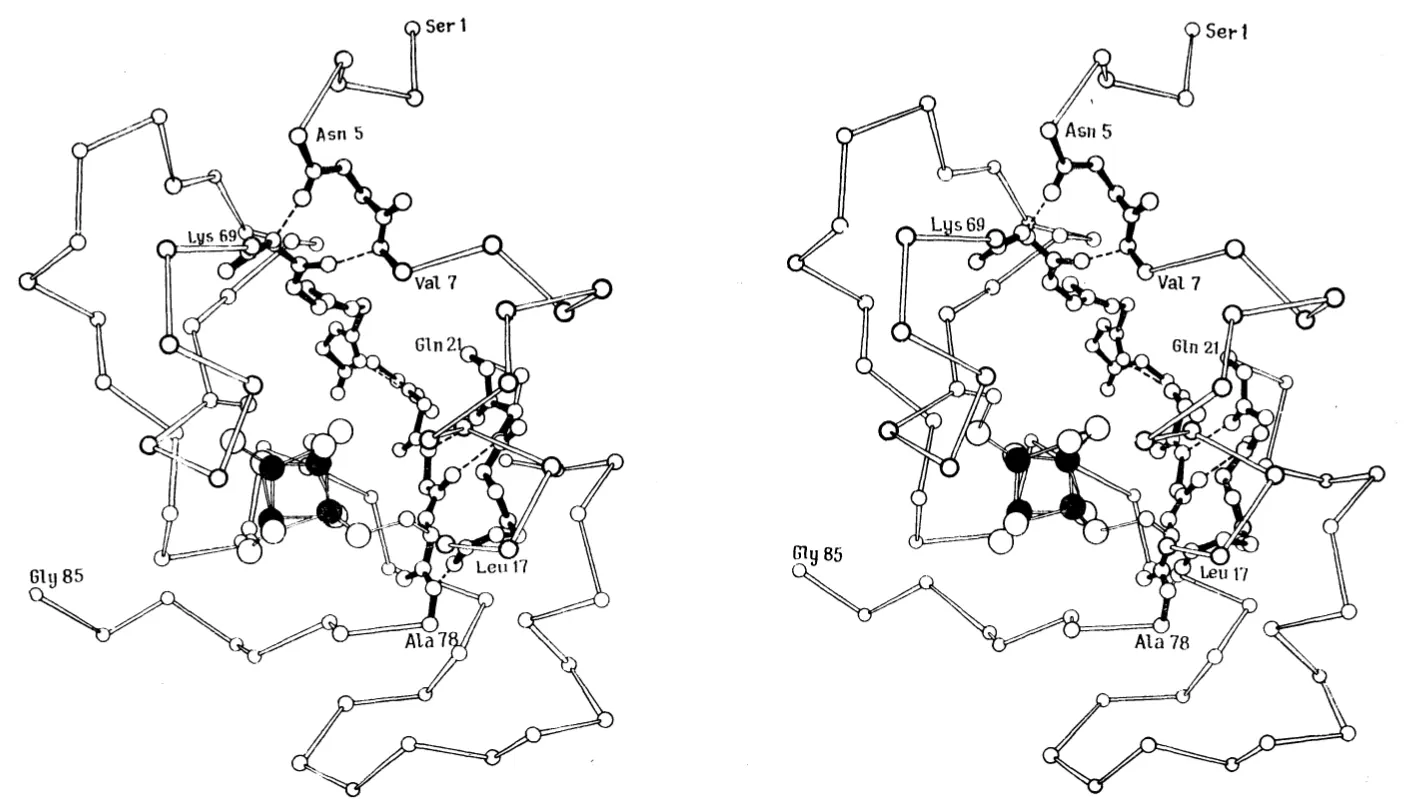
Рис. 15.14. Стереоскопічне зображення просторового розташування α-атомів Карбону 85 амінокислотних залишків і групи Fe4S8 у високопотенціальному білку пурпурних бактерій.
[From Carter C. W., Jr., Kraut J., Freer S. T., Xuong N., Alden R. A., Bartsch R. G., J. Biolog. Chem., 249, 4212 (1974).]
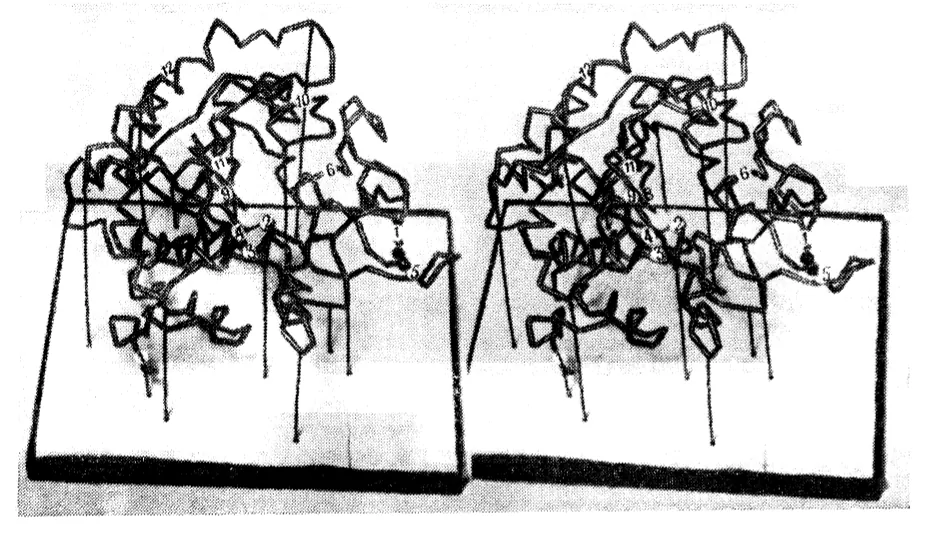
Рис. 15.15. Стереоскопічне зображення молекули протеолітичного ферменту карбоксипептидази А. Кожний відрізок відповідає амінокислотному залишку, що міститься між α-атомами Карбону. Поліпептидний ланцюг складається з 307 залишків і містить атом Цинку (білий шар між цифрами 2 і 4).
[From Lipscomb W. N., et al., Structure, Function and Evolution in Proteins, Brookhaven Symposia in Biology, № 21 (1968).]
На рис. 15.15 наведено структуру протеолітичного ферменту карбоксипептидази А. Поліпептидний ланцюг цього ферменту утворений 307 амінокислотними залишками й містить один іон Цинку. У ланцюгу є кілька α-спіральних ділянок, а також кілька викривлених ділянок складчастого шару (біля центра молекули). Каталітично активний центр ферменту розташований поруч з атомом Цинку. Просторова структура частини молекули лізоциму (цей фермент, виявлений у сльозах і яєчному білку, захищає організм від інфекцій, гідролізуючи полісахариди клітинних стінок бактерій) разом з молекулою субстрату наведена на рис. 15.16. Водневі зв'язки, що утворюються між ферментом і молекулою субстрату, змінюють конформацію останньої так, що знижується енергія активації реакції його гідролізу, і субстрат розщеплюється на дві молекули меншого розміру.
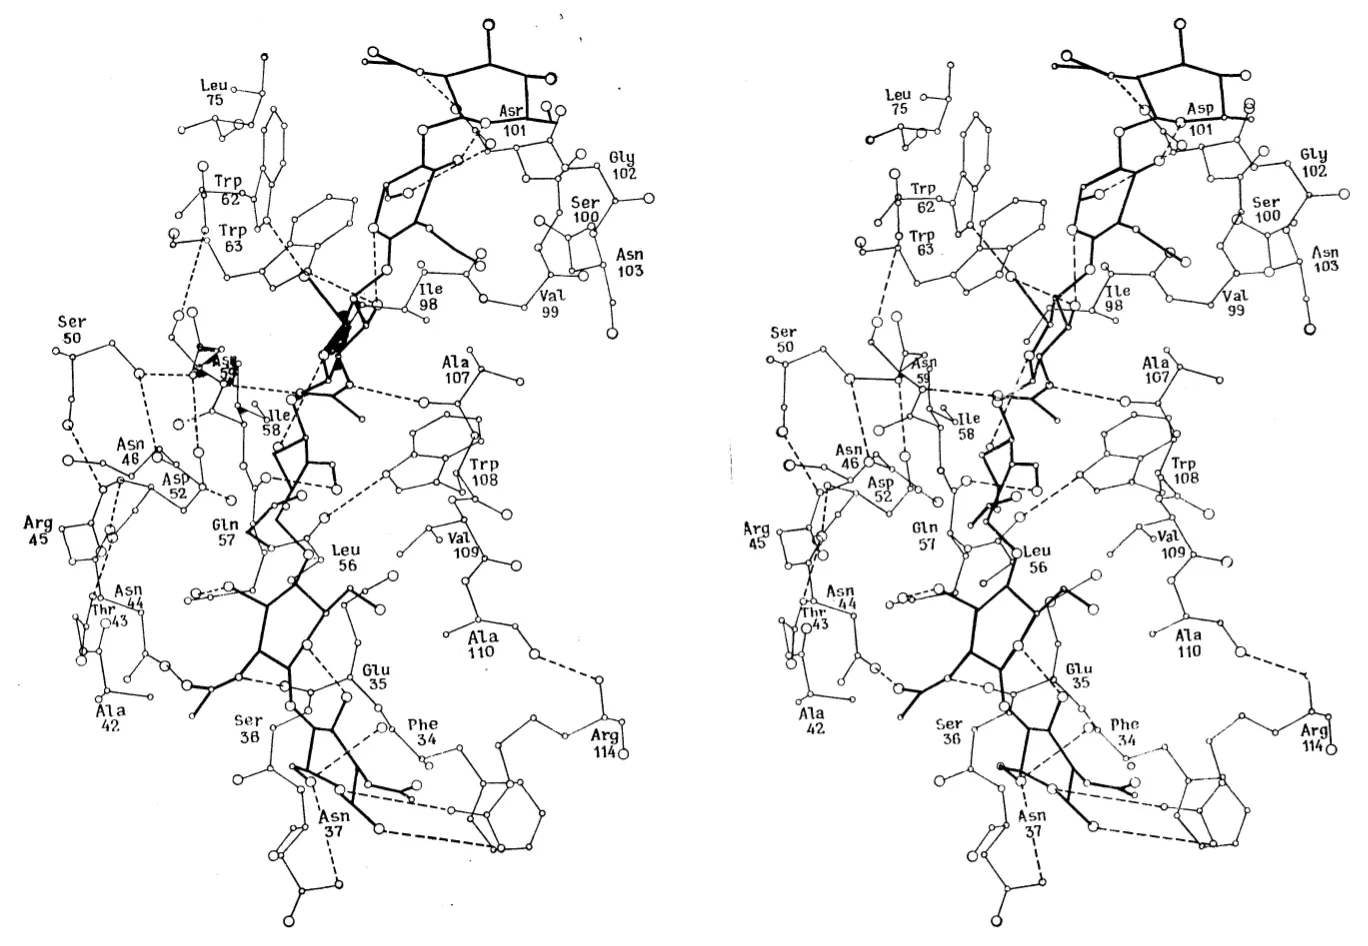
Рис. 15.16. Стереоскопічне зображення частини поліпептидного ланцюга ферменту лізоциму та молекули субстрату із шістьма глюкозними кільцями; контактуюча ділянка молекули субстрату деформована водневими зв'язками з ферментом. Розщеплення молекули субстрату відбувається між третім і четвертим кільцями.
[From Phillips D. C., professor, Oxford University.]