Лайнус Полінг, Пітер Полінг — Хімія
Тварини відрізняються від рослин здатністю вільно пересуватися. Пересування здійснюється за допомогою м'язів. М'язове волокно може мати 10—1000 мкм у діаметрі й досягати довжини до 35 см (кравецький м'яз людини).
Скорочення м'яза відбувається в результаті взаємодії білкових молекул. Зображення структурної одиниці м'язового волокна (саркомера), одержане методом електронної мікроскопії, наведено на рис. 15.8. У центрі кожного саркомера міститься набір філаментів (ниток) білка міозину; діаметр філамента приблизно 16 нм, довжина — близько 1500 нм. У проміжках між філаментами з обох кінців розташовані дрібніші філаменти іншого білка — актину, діаметром приблизно 7 нм і завдовжки близько 1000 нм. Філаменти актину прикріплені до пластинок, кожна з яких розділяє два сусідні саркомери, так, як показано на рис. 15.8. У м'язах хребетних тварин філаментів актину в чотири рази більше, ніж філаментів міозину. На рис. 15.9 наведено електронну мікрофотографію (×100 000) поперечного розрізу м'яза ноги жаби; на фотографії видно, що тонких філаментів удвічі більше, ніж товстих. (На другому кінці товстого філамента є ще один набір тонких філаментів.) Центри товстих філаментів віддалені один від одного приблизно на 45 нм, а найменша відстань між поверхнями тонкого й товстого філаментів становить близько 15 нм.
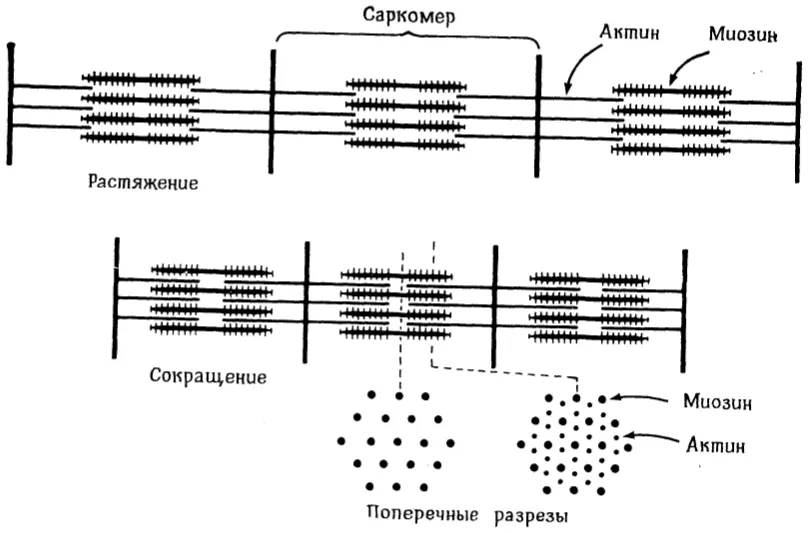
Рис. 15.8. Схема будови м'яза.
Філаменти актину можуть дисоціювати на глобулярні молекули з молекулярною масою приблизно 58 000. У самому філаменті ці молекули агреговані у два ланцюги, які скручені в подвійну спіраль (рис. 15.10). Філаменти міозину також можуть дисоціювати на окремі молекули міозину з молекулярною масою близько 525 000. За допомогою електронного мікроскопа встановлено, що вони мають форму стрижнів завдовжки 200 нм і діаметром 2,0 нм; на одному кінці такого стрижня розташована головка завдовжки 20 нм і діаметром 4 нм. Рентгенограми показують, що вторинна структура таких стрижнів являє собою α-спіраль, причому стрижень, імовірно, складається з двох скручених ланцюгів, які мають конформацію α-спіралі. Кожний філамент міозину складається приблизно з 600 молекул. Електронні мікрофотографії та рентгенограми показують, що молекули розташовані у філаменті майже паралельно одна одній, причому їхні хвости переплетені, а головки виступають над поверхнею стрижня. Головки орієнтовані в бік найближчого кінця філамента, так що його середня частина на відрізку приблизно 200 нм вільна від них. Головки містять близько 300 амінокислотних залишків у кожному з двох ланцюгів. Кожний ланцюг головки у формі α-спіралі має довжину 45 нм (для розтягнутої структури це значення більше) і легко «дістає» до прилеглого філамента актину.
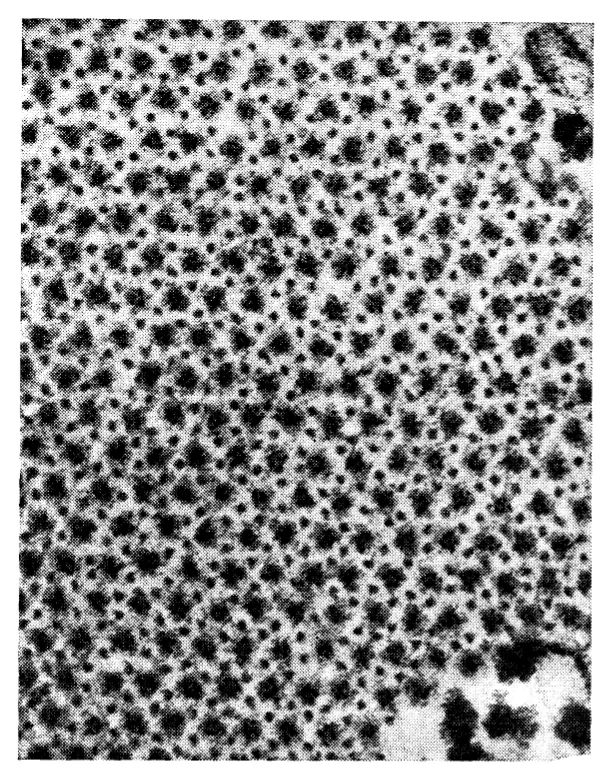
Рис. 15.9. Електронна мікрофотографія поперечного розрізу м'яза ноги жаби (×100 000).
[Courtesy of H. E. Huxley.]
Електронні мікрофотографії філамента актину в присутності молекул міозину показують, що молекули міозину прикріплюються до філамента актину так, що всі їхні хвости витягуються в напрямку одного кінця філамента.
Ці дані узгоджуються з уявленнями про м'язове скорочення, які проілюстровано на рис. 15.10. Кожний філамент міозину має близько 1800 виступних кінцевих ділянок ланцюгів (головок). На кожній молекулі актину, що входить до актинового філамента, є ділянки, комплементарні певним ділянкам на головках молекул міозину та здатні взаємодіяти з ними з утворенням слабкого зв'язку (див. підрозд. 15.5). Комплементарність може бути порушена внаслідок змін у структурі взаємодіючих ділянок, причому ця зміна може бути викликана якимось джерелом енергії. При стимуляції скорочення м'яза комплементарні ділянки починають з'єднуватися. Ланцюги міозину витягуються вздовж філамента актину, причому кожний ланцюг рухається до наступного місця зв'язування, внаслідок чого філамент актину дедалі глибше втягується між нитками міозину, і таким чином відбувається скорочення саркомера.
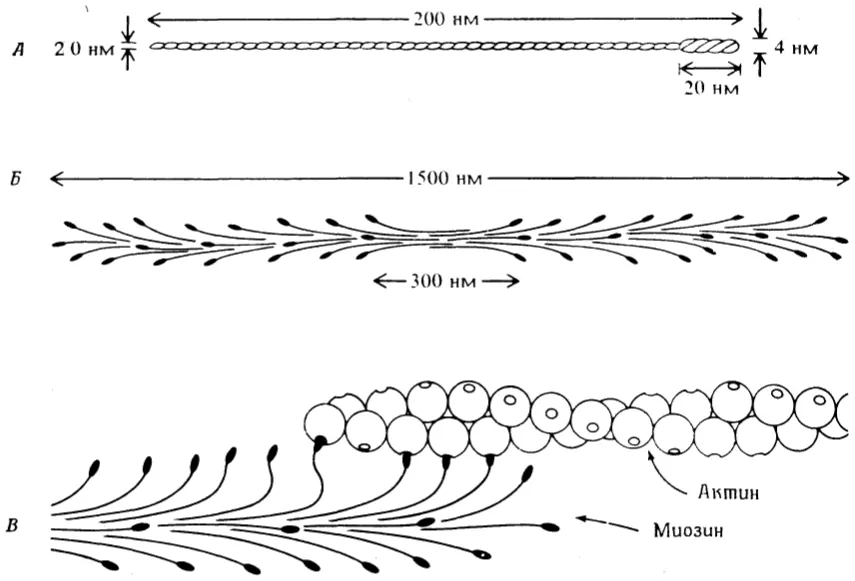
Рис. 15.10. А — молекула міозину; Б — філамент міозину; В — схема пересування філамента міозину вздовж філамента актину. Пересування здійснюється завдяки взаємодії зв'язувальних груп, розташованих у головках міозину, з комплементарними ділянками молекул актину.
У період розслаблення м'яза реакція з АТФ змінює структуру ділянок зв'язування, порушує комплементарність, і філаменти актину висуваються з проміжків між нитками міозину.
Поки що відсутні детальні уявлення про природу взаємодіючих груп актину та міозину. В 1 см3 м'яза міститься ~0,1 г міозину й 0,04 г актину, або 0,6·10−6 моля міозинових ланцюгів (три на молекулу) і 0,7·10−6 моля актину. Приблизна відповідність між цими числами підтверджує цілком прийнятне припущення про те, що одна ділянка зв'язування припадає на один ланцюг міозину й на одну молекулу актину.
Сила м'язового скорочення становить приблизно 3,5 кг на 1 см2 поперечного перерізу, а скоротливість волокон близько 33%. Отже, робота, яку виконує 1 см3 м'язів при скороченні, дорівнює приблизно 0,1 Дж, що відповідає 143 кДж·моль−1 актину. Така величина, яка в кілька разів перевищує енергію, що її забезпечує одна молекула АТФ, змушує припустити, що реакція відбувається в кілька стадій.