Лайнус Полінг, Пітер Полінг — Хімія
Однією з найпоразливіших та найцікавіших особливостей нашого світу є існування людини й інших організмів, здатних мати потомство, якому вони передають багато зі своїх ознак. Механізм, за допомогою якого дитина розвивається так, що стає схожою на своїх батьків, інтенсивно вивчали впродовж сотні років, проте поступ у пізнанні цього явища став особливо помітним в останні 25 років.
У 1866 р. абат Грегор Мендель (1822—1884) запропонував просту теорію передачі спадкових ознак, засновану на результатах дослідів зі схрещування двох сортів гороху, які він проводив у саду августинського монастиря в Брюнні в Моравії (нині Брно, Чехословаччина). Він установив, що результати дослідів можна пояснити, якщо припустити, що кожна рослина другого покоління отримує від кожної з двох батьківських рослин якийсь задаток, або фактор (званий тепер геном), який визначає розвиток однієї спадкової ознаки. Згідно із сучасними уявленнями, гени лінійно розташовані у більших структурах — хромосомах, які можна побачити в ядрах клітин за допомогою потужного мікроскопа.
Гени, що різняться між собою і можуть займати в хромосомі однакові ділянки, називаються алелями або алеломорфними генами. Розглянемо, наприклад, досліди Менделя, який схрещував два сорти гороху, в одного з яких насіння було гладеньким, а в другого — зморшкуватим. Гібриди першого покоління дали гладеньке насіння. Проте під час самозапилення рослин, вирощених із цього насіння, у гібридів отриманого таким шляхом другого покоління три чверті насіння виявилися гладенькими і близько однієї чверті — зморшкуватими. Результати цих та багатьох аналогічних дослідів Мендель пояснив тим, що рослини одного батьківського сорту несуть два алелі, відповідальні за гладеньку поверхню насіння, а рослини другого батьківського сорту — два алелі, відповідальні за зморшкуватість насіння. Гібриди між цими двома сортами отримують по одному алелю від кожного з батьків, причому, як припустив Мендель, алель гладенької форми насіння є домінантним, а алель зморшкуватої форми — рецесивним; це означає, що коли гібрид має хоча б один домінантний алель, то все насіння буде гладеньким, так само як і в тому разі, коли гібрид несе обидва алелі гладенької форми насіння. У наступному поколінні рослин, отриманому схрещуванням гібридів першого покоління, алель гладенької форми насіння й алель зморшкуватої форми насіння передавалися від того й іншого з батьків за законом випадку. Отже, можна було очікувати, що одна четверта частина потомства матиме генетичну структуру RR (де R — домінантний алель), половина потомства матиме генетичну структуру Rr або rR і одна четверта частина — генетичну структуру rr (r — рецесивний алель). Гібриди RR матимуть гладеньке насіння, гетерозиготи Rr і rR (що несуть різноякісні алелі) також матимуть гладеньке насіння, оскільки алель R домінує над алелем r, а рецесивні гомозиготи rr (обидва алелі однакові) матимуть зморшкувате насіння.
Теорія гена почала плідно й швидко розроблятися після 1910 р. внаслідок експериментів із плодовою мушкою (Drosophila), здійснених Томасом Гентом Морганом та його співробітниками (особливо А. Г. Стертевантом, К. Бриджесом і Г. Дж. Меллером), яким пощастило визначити порядок розташування багатьох генів у хромосомах цього організму. Подальші успіхи генетики пов'язані з роботами дослідників (головним чином Дж. У. Бідла та Е. Л. Тейтема), які використовували як об'єкт червону хлібну плісняву (Neurospora), а також Дж. Ледерберга та інших, що вивчали генетику бактерій.
Взаємозв'язок між генами та молекулами білка можна простежити на прикладі різних форм гемоглобіну, виявлених в еритроцитах людини. У 1949 р. було встановлено, що в деяких людей, які страждають на серпоподібноклітинну анемію, еритроцит містить форму гемоглобіну (гемоглобін S), яка відрізняється від гемоглобіну еритроцитів більшості людей (гемоглобін A). Відмінність цих форм невелика: два α-ланцюги молекули гемоглобіну S ідентичні α-ланцюгам молекули гемоглобіну A, а β-ланцюги різняться одним амінокислотним залишком. β-Ланцюг гемоглобіну A має в шостому положенні, рахуючи від NH2-кінця поліпептидного ланцюга, залишок глутамінової кислоти, тоді як β-ланцюг гемоглобіну S має в цьому положенні залишок валіну; усі інші залишки амінокислот такі самі, як і в гемоглобіні A.
Аномальний гемоглобін в еритроцитах хворих на серпоподібноклітинну анемію і є причиною цієї дуже серйозної хвороби. Експериментально встановлено, що в батьків людини, яка страждає на цю хворобу, в еритроцитах присутня суміш 50% гемоглобіну A і 50% гемоглобіну S. У середньому четверта частина потомства від таких шлюбів буде гомозиготною за мутантним геном, який визначає синтез аномального гемоглобіну (генотип SS), і страждатиме на серпоподібноклітинну анемію. Очевидно, гени A і S виконують свої функції цілком незалежно один від одного: у разі гетерозиготних особин (генотип AS) кожен із генів визначає синтез гемоглобіну свого типу, і внаслідок цього кожен еритроцит містить суміш гемоглобінів A і S.
Приблизно 25 років тому були отримані дані, які свідчили про те, що ген є молекулою дезоксирибонуклеїнової кислоти (скорочено ДНК). Нині встановлено хімічну природу ДНК і відома її молекулярна структура. Характер цієї структури дає змогу зрозуміти в істотних рисах механізм подвоєння (редуплікації, або реплікації) молекул ДНК, завдяки чому утворені молекули-копії можуть передаватися нащадкам через статеві клітини, а також потрапляють в усі клітини під час їх поділу в процесі росту організму. У результаті кожна клітина отримує один і той самий набір генів.
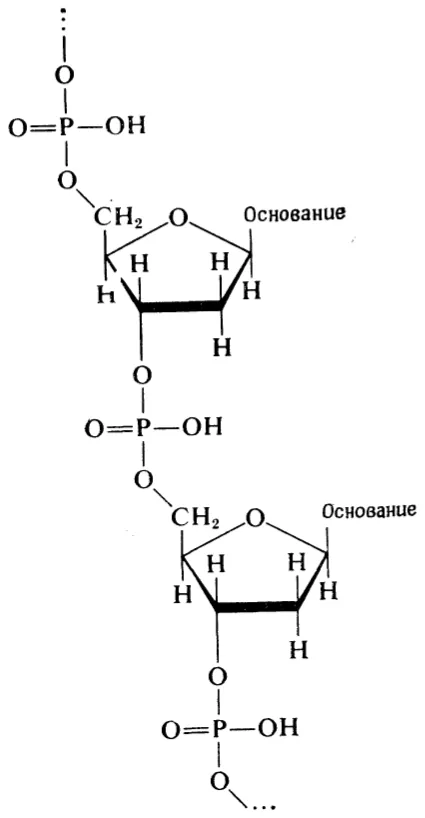
Молекула ДНК складається з мономерів, які називаються нуклеотидами і утримуються разом хімічними зв'язками в лінійній послідовності, що називається полінуклеотидним ланцюгом або молекулою нуклеїнової кислоти. Кожен нуклеотид складається з трьох складових частин: молекули фосфатної кислоти, молекули моносахариду дезоксирибози (див. підрозд. 13.6) і молекули азотовмісної сполуки, що називається азотистою основою. Молекули моносахариду й фосфатної кислоти конденсуються, утворюючи довгі полінуклеотидні ланцюги
Дезоксирибоза є пентозою (цукром, що має формулу C5H10O5), яка втратила один атом Оксигену, після чого її формула стає C5H10O4; структурна формула дезоксирибози (підрозд. 13.6) має вигляд
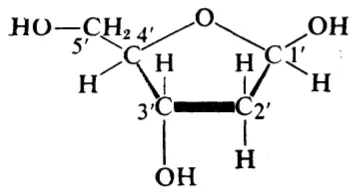
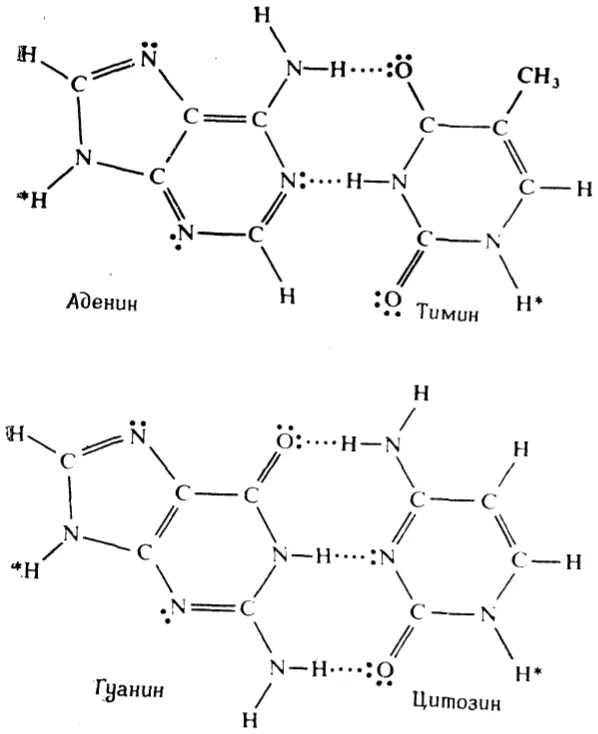
Рис. 15.20. Специфічне (за принципом комплементарності) утворення водневих зв'язків між аденіном і тиміном та між гуаніном і цитозином.
Дві гідроксильні групи, приєднані до атомів Карбону 3′ і 5′ дезоксирибози, конденсуються з гідроксильними групами окремих молекул фосфатної кислоти OP(OH)3, внаслідок чого й утворюється вуглеводнофосфатний скелет ДНК. Атом Нітрогену, що входить до складу азотистої основи, заміщує гідроксильну групу атома Карбону 1′ дезоксирибози.
Азотисті основи, виявлені в ДНК, представлені двома пуриновими основами — аденіном і гуаніном — та двома піримідиновими основами — тиміном і цитозином. У формулах, наведених на рис. 15.20, зірочками позначено атоми Гідрогену, які в ДНК заміщуються атомом Карбону кільця цукру; розташування подвійних зв'язків відповідає лише одній з кількох можливих валентних структур для кожної молекули. Такі молекули мають плоску конфігурацію, оскільки кожен із зв'язків у пуринових і піримідинових кільцях має характер частково подвійного зв'язку.
Хімічний аналіз ДНК з ядер клітин показує, що хоча відносне число молекул двох пуринових основ — аденіну і гуаніну — різне в різних біологічних видів, молекулярне відношення аденін/тимін дорівнює одиниці й відношення гуанін/цитозин також дорівнює одиниці. Так, відсотковий вміст цих основ у спермі людини такий: 31% аденіну, 19% гуаніну, 31% тиміну і 19% цитозину.
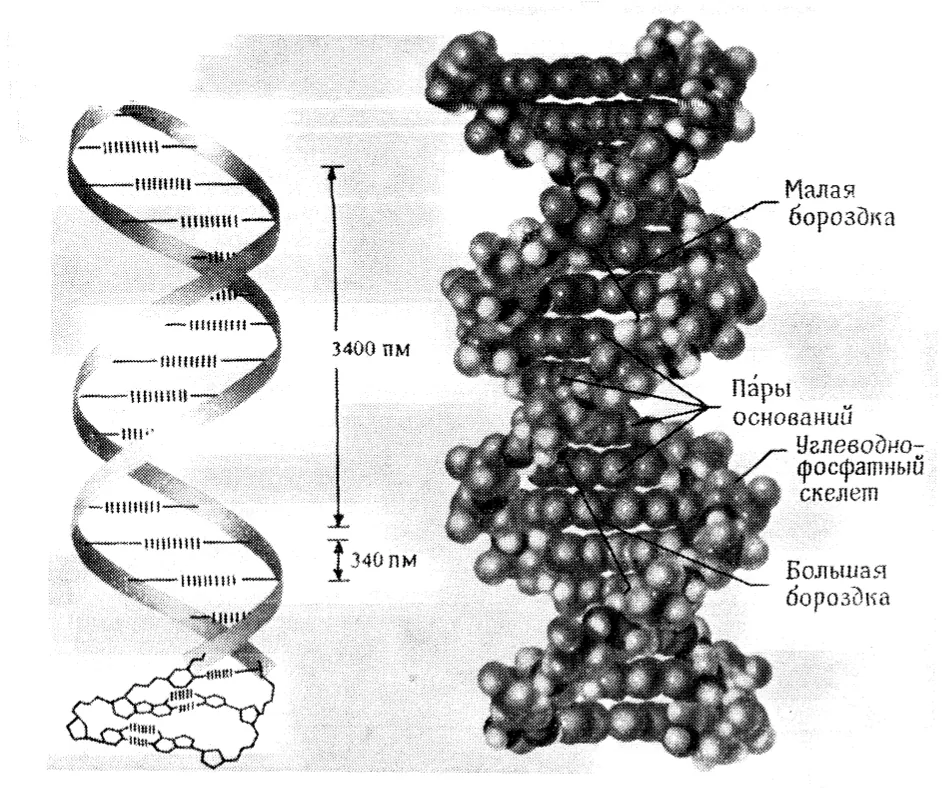
Рис. 15.21. Модель подвійної спіралі ДНК, запропонована Уотсоном і Кріком.
Експериментальні дані про хімічний склад ДНК вдалося інтерпретувати лише після того, як було теоретично обґрунтовано її структуру. У 1953 р., скориставшись винятково чіткими дифракційними картинами ДНК, одержаними М. Г. Ф. Вілкінсом, американський біолог Дж. Д. Уотсон і англійський біофізик Ф. Г. К. Крик припустили, що молекули ДНК складаються з двох ланцюгів, закручених один відносно одного у вигляді спіралі таким чином, що через кожні 330 пм уздовж осі такої подвійної спіралі розташовані залишок аденіну або гуаніну і залишок тиміну або цитозину. При цьому такі залишки утворюють комплементарні пари аденін-тимін і гуанін-цитозин (рис. 15.21). Спарювання основ за принципом комплементарності пояснено на рис. 15.20, з якого видно, що між аденіном і тиміном можуть утворюватися два, а між цитозином і гуаніном — три водневі зв'язки.
Згідно з гіпотезою Уотсона — Крика, чотири основи — аденін, тимін, гуанін і цитозин, що позначаються відповідно літерами A, T, G і C, — розташовані у певній послідовності в одному з полінуклеотидних ланцюгів у гені та в комплементарній послідовності в іншому полінуклеотидному ланцюзі. На кожному рівні перебуває одна з таких чотирьох пар азотистих основ: —A=T—, —T=A—, —G≡C—, —C≡G—. Подвійні й потрійні рисочки позначають два або три водневі зв'язки, як показано на рис. 15.20.
Реплікація ДНК
ДНК не лише детермінує утворення інших молекул, що буде описано нижче, а й копіює (реплікує) сама себе. Уотсон і Крик постулювали такий механізм подвоєння молекул ДНК у процесі поділу клітини: подвійна спіраль, що складається з двох комплементарних полінуклеотидних ланцюгів, розкручується на окремі ланцюги, і одночасно починається синтез нових полінуклеотидних ланцюгів за участю ферментів як каталізаторів та вихідних ланцюгів ДНК як матриць. Новий ланцюг, що синтезується на одному з вихідних ланцюгів, ідентичний другому вихідному ланцюгу, внаслідок чого зберігається комплементарність. Таким чином, коли процес завершується, виходять дві ідентичні подвійні спіралі, кожна з яких складається з одного вихідного ланцюга й одного заново синтезованого ланцюга (рис. 15.22).
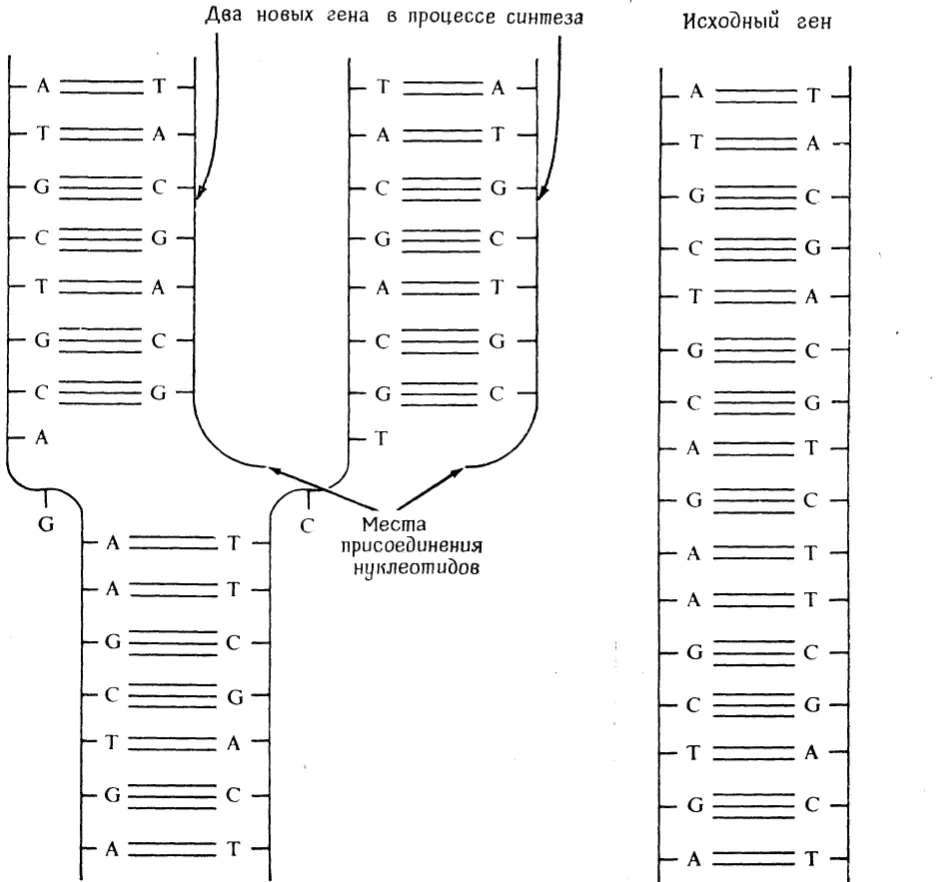
Рис. 15.22. Схема постульованого механізму реплікації гена за допомогою синтезу двох нових полінуклеотидних ланцюгів, комплементарних ланцюгам вихідного гена. Спіральну структуру ланцюгів на схемі не показано.
Цей процес є найдивовижнішим і найяскравішим прикладом загальнішого явища — досягнення біологічної специфічності шляхом взаємодії комплементарних структур, аналогічних тим, які зумовлюють зв'язування антитіл та антигенів (підрозд. 15.5). Об'єднання пуринових і піримідинових основ у пари шляхом утворення двох або трьох водневих зв'язків відбувається відповідно до принципу комплементарності. Взаємне положення основ у вуглеводнофосфатному скелеті ДНК таке, що лише пуринова основа одного ланцюга і піримідинова основа іншого ланцюга можуть утворити між собою водневий зв'язок. У принципі можливі й неправильні пари — AC і GT. Проте, як видно з рис. 15.20, між A і C не можуть утворитися водневі зв'язки за заданого положення основ у ланцюзі ДНК. Між G і T міг би виникнути один водневий зв'язок, але насправді «середні» атоми Гідрогену (зв'язані з атомами Нітрогену кілець як у G, так і в T) створюють просторові перешкоди, які утримують G і T досить далеко один від одного, перешкоджаючи утворенню такого зв'язку. Енергія водневого зв'язку становить приблизно 20 кДж·моль−1, і, отже, введення в ланцюг, що будується, правильної («дозволеної») пуринової або піримідинової основи дає енергетичний виграш у 40 або 60 кДж·моль−1.
Можна зробити наближені, але тим не менш переконливі розрахунки ймовірності помилки, яка може виникнути в окремій ділянці під час синтезу полінуклеотидного ланцюга на комплементарному матричному ланцюзі. Зміна ентропії, пов'язана з уведенням у ланцюг, що будується, неправильного нуклеотиду, майже така сама, як і в разі правильного, і відповідно різниця в енергії Гіббса практично дорівнює різниці в ентальпії, тобто становить 40 кДж·моль−1 (або 60 кДж·моль−1). Використовуючи уявлення про хімічну рівновагу для розглядуваного процесу, можна записати
$$RT \ln (N^*/N) = \Delta G^\circ - \Delta G^{\circ *} = -40\ \text{кДж}\cdot\text{моль}^{-1}$$
Тут ΔG° — зміна стандартної енергії Гіббса для реакції введення правильного нуклеотиду в ланцюг, що будується, ΔG°* — те саме для неправильного нуклеотиду, N — число правильних уведених нуклеотидів (за рівноваги), N* — число неправильних нуклеотидів. З рівняння випливає
$$\ln (N^*/N) = \frac{-40\ \text{кДж}\cdot\text{моль}^{-1}}{RT} = -15{,}52,$$
$$N^*/N = 1{,}8 \times 10^{-7}.$$
Цей розрахунок зроблено для пари A=T. Для пари G≡C відношення значно менше. Середнє значення для двох пар становить 0,9·10−7, тобто ймовірність потрапляння в ланцюг неправильного нуклеотиду — один випадок на 107. Такий самий результат одержується під час порівняння відносних швидкостей двох реакцій, якщо різниця енергії активації для них дорівнює 40 кДж·моль−1.
Нижче, під час розгляду синтезу білка, буде зазначено, що ген, який спрямовує синтез одного з поліпептидних ланцюгів гемоглобіну, містить близько 500 пар основ. Наведений вище приблизний розрахунок дає змогу зробити висновок, що ймовірність помилки під час синтезу одного гена менша, ніж 1 на 20 000 (5·10−5). Експериментально встановлено, що фактично число помилок набагато менше за цю величину і становить, мабуть, лише 1% від неї. Це пояснюється тим, що в клітині існують ферменти, які виявляють помилки й вирізають неправильний нуклеотид із полінуклеотидного ланцюга, а інші ферменти вводять у ланцюг правильний нуклеотид, виправляючи таким чином помилку.
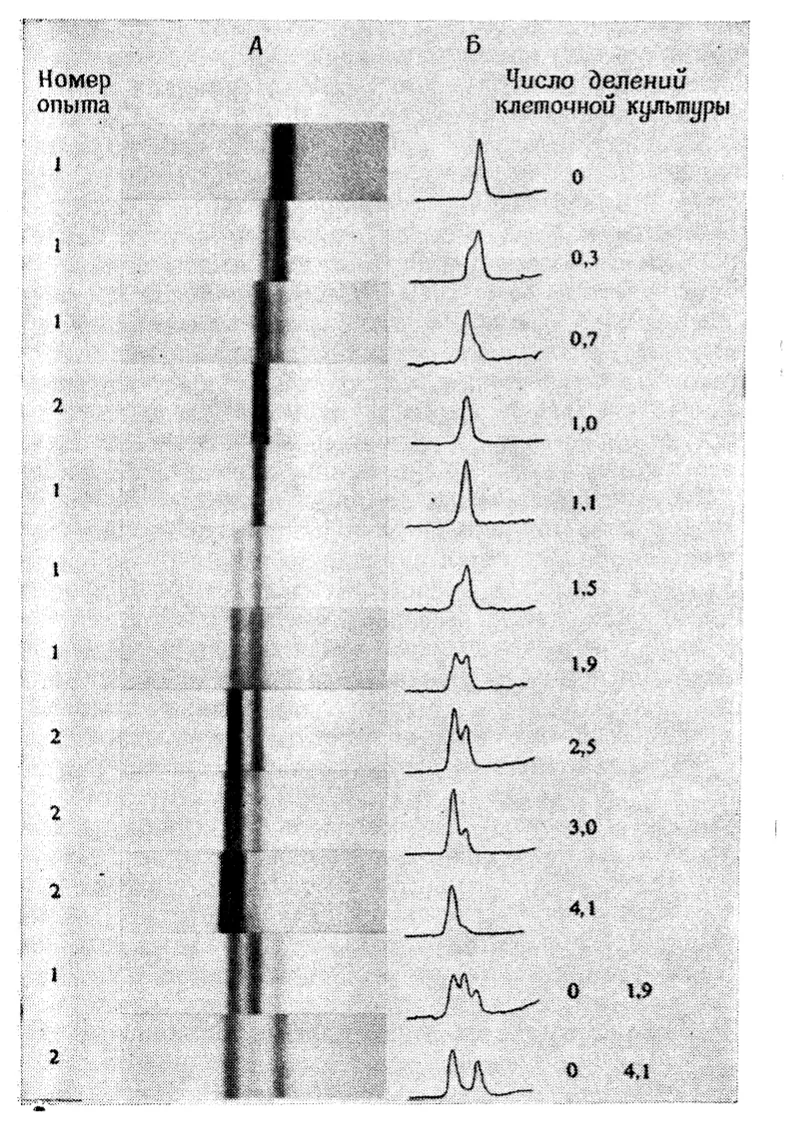
Рис. 15.23. Розподіл ДНК при ультрацентрифугуванні в градієнті густини, одержаний в експериментах Мезельсона і Шталя.
На периферичному кінці пробірки осаджується ДНК з більшою густиною за рахунок присутності в ній 15N. У першому поколінні (після одного поділу клітин у звичайному середовищі з 14N) спостерігається ДНК, що містить лише половину вихідної кількості 15N.
[From Meselson M., Stahl F. W., Proceedings of the National Academy of Science, USA, 44, 675 (1957).]
Перше покоління дочірніх молекул ДНК складається наполовину зі старих і наполовину з нових полінуклеотидних ланцюгів. Це було підтверджено чудовим експериментом на бактеріальних культурах із використанням мічених атомів (15N; підрозд. 20.17). Про цей дослід у 1958 р. повідомили М. Мезельсон і Ф. У. Шталь. Вони вирощували кілька поколінь кишкової палички (Escherichia coli) на поживному середовищі, в якому була присутня сполука Нітрогену з високим вмістом важкого ізотопу 15N. Виділена в цьому разі бактеріальна ДНК мала більшу молекулярну масу (атоми в молекулі були ті самі) і більшу густину, ніж ДНК, одержана з бактерій, вирощених на звичайному середовищі. Різницю густини визначали методом, який називається ультрацентрифугуванням у градієнті густини. Розчин цезій хлориду поміщають у центрифужну пробірку й обертають ротор з такою швидкістю, щоб одержати відцентрове прискорення, у 100 000 разів більше за прискорення земного тяжіння. У відцентровому полі концентрація іонів Цезію, що мають високу густину (разом з іонами Хлору, які компенсують їхній заряд), буде вищою на периферичному кінці пробірки. Таким чином, у напрямку до периферії в пробірці створюється градієнт густини. Великі молекули, на кшталт ДНК, під час уведення в пробірку і створення силового поля концентруються в зонах, де їхня густина дорівнює густині розчину цезій хлориду, тобто на периферичному кінці пробірки. Мезельсон і Шталь перенесли бактерії, вирощені в середовищі, збагаченому 15N, у звичайне середовище. Після першого поділу бактеріальних клітин молекули ДНК, добуті з них, давали в центрифужній пробірці проміжну зону, розташовану між зонами з важкими (15N) і нормальними (14N) молекулами (рис. 15.23). Крім того, за відповідної обробки молекули ДНК могли розщеплюватися на два окремі ланцюги, і половина з них (як було показано також ультрацентрифугуванням у градієнті густини) складалася лише з важких ланцюгів, а друга половина — лише з легких ланцюгів. Таким чином, було доведено постульоване положення про те, що перше покоління в потомстві ДНК містить один вихідний ланцюг і один заново синтезований ланцюг. Після наступного (другого) поділу клітин половина молекул ДНК була змішаного типу, а друга половина не містила ізотопу 15N.
Генетичний код і синтез білків
Механізм синтезу білка включає перенесення інформації від одного з ланцюгів спіралі ДНК до молекули рибонуклеїнової кислоти (РНК), яка комплементарна цьому ланцюгу ДНК. Молекула РНК містить цукор рибозу
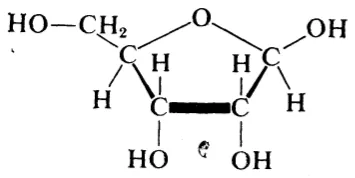
(замість дезоксирибози в ДНК) і піримідинову основу урацил (U) (замість тиміну).
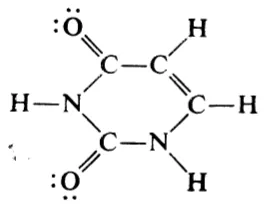
Здатність урацилу утворювати водневі зв'язки (два зв'язки з аденіном) така сама, як і в тиміну, від якого він відрізняється лише тим, що замість метильної групи містить Гідроген (див. рис. 15.20). Кожен ген (молекула ДНК) може правити за матрицю для синтезу багатьох молекул матричної РНК. Будь-яка така молекула несе інформацію, що зберігається в гені. Ця інформація потім використовується (за допомогою інших молекул, насамперед певних ферментів) під час синтезу поліпептидних ланцюгів білків.
Встановлено, що три нуклеотиди добирають амінокислоту для включення в поліпептидний ланцюг; можна сказати, що ген є послідовністю трилітерних слів (названих кодонами), складених за допомогою чотирилітерного алфавіту — A, T, G, C для ДНК і аналогічно A, U, G, C для РНК. Таким чином, 146 кодонів, 438 літер (плюс кілька кодонів, що слугують сигналами початку й припинення синтезу) мають становити ген, який кодує синтез β-ланцюга гемоглобіну, що містить 146 амінокислотних залишків. Кожна молекула РНК виробляє сотні β-ланцюгів; у зрілому еритроциті є близько 100 000 000 молекул гемоглобіну.
Генетичний код, мабуть, універсальний, тобто єдиний для всіх організмів. Такий код наведено в табл. 15.1. Цей код є виродженим: для кодування двадцяти амінокислот чотирилітерний алфавіт дає змогу скласти 64 трилітерні слова, і, таким чином, кожна амінокислота кодується більш ніж одним кодоном. Виродженість пов'язана головним чином із третьою літерою кодону.
Описаний нижче експеримент показує, яким чином було розшифровано генетичний код. Розчин ферментів, одержаний із бактеріальних клітин і доданий до розчину, що містить усі 20 амінокислот, викликає синтез поліпептидного ланцюга, який складається лише із залишків амінокислоти фенілаланіну, якщо до нього додати синтетичну РНК, що складається з поліурацилу (тобто послідовність U-U-U-U-...). Отже, кодоном для фенілаланіну слугує UUU, як показано в табл. 15.1. Основну роботу з розшифрування генетичного коду виконали американські вчені М. У. Ніренберг, Х. Г. Корана і Р. Г. Холлі зі своїми співробітниками; при цьому вони використовували ферменти, відкриті А. Корнбергом і С. Очоа.
Процес синтезу поліпептидних ланцюгів наведено на рис. 15.24. У гені один із двох полінуклеотидних ланцюгів ДНК передає інформацію комплементарній молекулі матричної РНК (мРНК). Рибосоми пересуваються вздовж цієї мРНК і беруть участь у приєднанні амінокислотних залишків, що йдуть один за одним, до поліпептидного ланцюга, який будується, доти, доки ланцюг не буде повністю синтезований. У цьому процесі беруть участь молекули транспортної РНК (тРНК), а також ферменти кількох типів. Кілька рибосом можуть одночасно переміщатися вздовж однієї молекули мРНК. За період життя клітини один ген може виробляти кілька тисяч молекул мРНК, а кожна молекула мРНК може спрямовувати синтез сотень молекул білка.
Таблиця 15.1. Генетичний код
| Перша літера | Друга літера | Третя літера | |||
|---|---|---|---|---|---|
| U | C | A | G | ||
| U | UUU Phe | UCU Ser | UAU Tyr | UGU Cys | U |
| UUC Phe | UCC Ser | UAC Tyr | UGC Cys | C | |
| UUA Leu | UCA Ser | UAA * | UGA * | A | |
| UUG Leu | UCG Ser | UAG * | UGG Trp | G | |
| C | CUU Leu | CCU Pro | CAU His | CGU Arg | U |
| CUC Leu | CCC Pro | CAC His | CGC Arg | C | |
| CUA Leu | CCA Pro | CAA Gln | CGA Arg | A | |
| CUG Leu | CCG Pro | CAG Gln | CGG Arg | G | |
| A | AUU Ile | ACU Thr | AAU Asn | AGU Ser | U |
| AUC Ile | ACC Thr | AAC Asn | AGC Ser | C | |
| AUA Ile | ACA Thr | AAA Lys | AGA Arg | A | |
| AUG Met | ACG Thr | AAG Lys | AGG Arg | G | |
| G | GUU Val | GCU Ala | GAU Asp | GGU Gly | U |
| GUC Val | GCC Ala | GAC Asp | GGC Gly | C | |
| GUA Val | GCA Ala | GAA Glu | GGA Gly | A | |
| GUG Val | GCG Ala | GAG Glu | GGG Gly | G | |
* Слугує сигналом для обриву поліпептидного ланцюга.
У кожній молекулі мРНК є ланцюг із кількох сотень аденілових залишків (полі A), приєднаний до одного з її кінців. Було виявлено, що цей ланцюг стає коротшим, у міру того як мРНК править за матрицю для дедалі більшого числа білкових ланцюгів. Мабуть, кожна рибосома під час руху вздовж мРНК відрізає один або два залишки A, а вірогідніше, навіть три. Цей процес, можливо, слугує механізмом, що обмежує синтез білка, внаслідок чого в клітині не утворюється надлишку білка одного типу.
Рибосоми мають молекулярну масу близько 2,7·108 і складаються приблизно на 65% з рибосомної РНК (рРНК) і на 35% з рибосомних білків. рРНК представлена молекулами двох типів — малою, з молекулярною масою близько 500 000, і великою, з молекулярною масою приблизно 1 000 000. Одна з них, мабуть, бере участь у прикріпленні рибосоми до молекули мРНК, інша — у зв'язуванні молекул тРНК.
Транспортна РНК (тРНК) має молекулярну масу близько 25 000. Існує близько сорока різних типів тРНК, приблизно по дві на кожну з двадцяти амінокислот (імовірно, що відповідають двом або більше кодонам, табл. 15.1). Молекула специфічної тРНК приєднується до певної амінокислоти, особливі ферменти (аміноацилсинтетази) допомагають тРНК упізнавати свої амінокислоти. Амінокислота приєднується до тРНК ковалентним зв'язком своєю карбоксильною групою. Цей зв'язок високоенергетичний, і його енергія сприяє прискоренню реакції приєднання амінокислотного залишку до поліпептидного ланцюга, що будується. Процеси, які відбуваються в рибосомах під час утворення поліпептидних ланцюгів, забезпечуються енергією гідролізу молекул ГТФ (гуанозинтрифосфату, аналога АТФ, підрозд. 14.6).
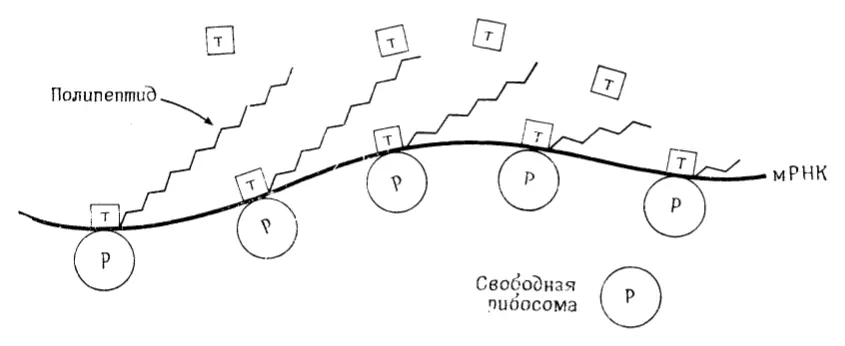
Рис. 15.24. Схема синтезу поліпептидних ланцюгів.
Довга напівжирна лінія — молекула мРНК; ○ рибосоми, що пересуваються вздовж мРНК; □ молекули специфічних тРНК доставляють відповідні амінокислоти для поліпептидного ланцюга, який будується.
Послідовність приблизно з 75 нуклеотидних залишків була визначена для багатьох молекул різних тРНК. У всіх них виявлено чотири однакові ділянки, утворені комплементарними парами A=U або G≡C, як показано на рис. 15.25. Існування цих ділянок дало змогу зробити висновок, що молекула має форму листка конюшини, наведену на рис. 15.25. Цю структуру було підтверджено рентгеноструктурним аналізом кристалів дріжджової фенілаланінової тРНК (рис. 15.26).
Залишки, що утворюють петлі (рис. 15.25), виявлено в більшості молекул тРНК. Мабуть, деякі з цих залишків утворюють водневі зв'язки з комплементарними залишками рРНК. У молекулах рРНК є взаємно комплементарні послідовності, які свідчать про те, що в них є петлі, утворені водневими зв'язками, аналогічні зображеним на рис. 15.25 і 15.26. Залишки, показані в нижній частині рис. 15.25, являють собою кодон певної амінокислоти. Добір відповідної тРНК включає утворення водневих зв'язків із комплементарною послідовністю в нитці мРНК. Після того як амінокислотний залишок приєднується до поліпептидного ланцюга, що будується, молекула тРНК звільняється, і рибосома пересувається до наступного кодону, до якого приєднується відповідна йому тРНК. Приєднання одного амінокислотного залишку до поліпептидного ланцюга займає близько 0,05 с.
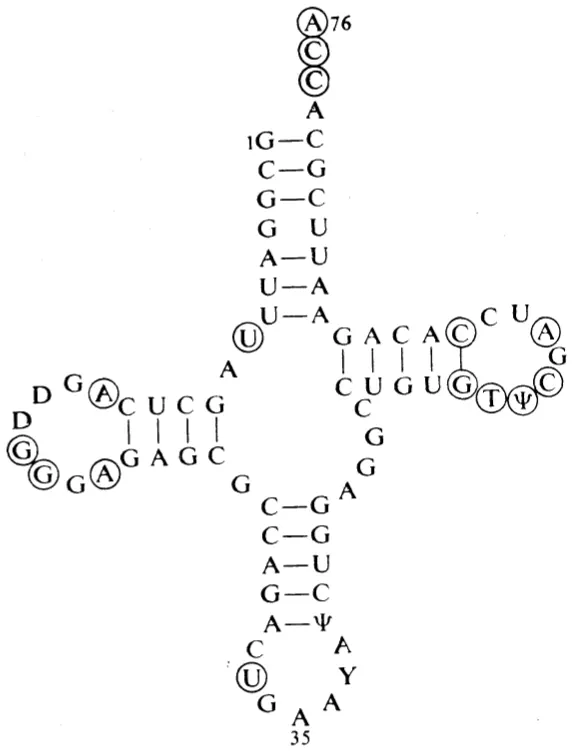
Рис. 15.25. Послідовність нуклеотидів у дріжджовій фенілаланіновій тРНК.
D, Ψ і Y — відповідно 4,5-дигідроуридин, псевдоуридин і диметилгуанозин.
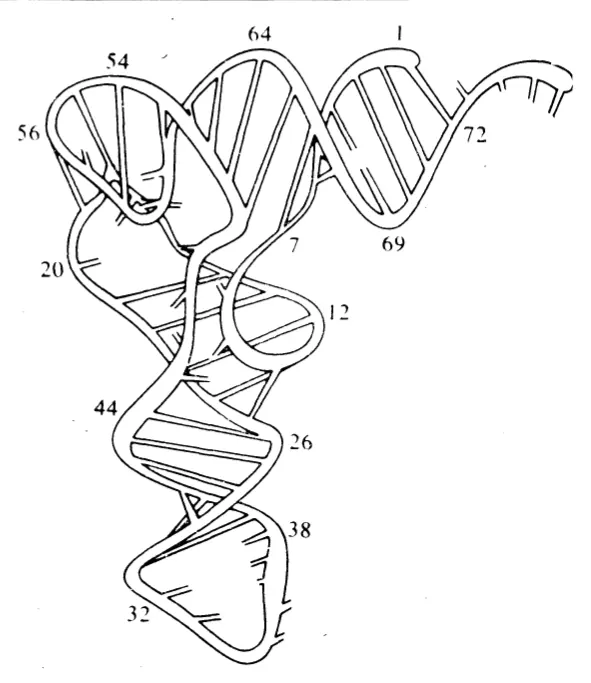
Рис. 15.26. Схема тривимірної структури дріжджової фенілаланінової тРНК за даними рентгеноструктурного аналізу.
Структура ланцюга, що складається з 76 нуклеотидів, з'єднана водневими зв'язками (прямі відрізки).
[From Kim S. H., Suddath F. L., Quigley G. J., MacPherson A., Sussman J. L., Wang A. H. J., Seeman N. C., Rich A., Science, 185, 435 (1974). © 1974 by the American Association for the Advancement of Science.]