Лайнус Полінг, Пітер Полінг — Хімія
Одним із важливих фібрилярних білків є кератин, з якого складаються волосся, нігті, роги, голки дикобраза тощо. Кожен із власного досвіду знає, що кератин (від грец. keros — ріг) править для тварин за чудовий засіб захисту, який оберігає їх від дії несприятливих чинників довкілля. Англійський учений у галузі молекулярної біології В. Т. Естбері (1898—1961) виявив у 1931 р., що волосся та інші кератини зазвичай дають характерні рентгенограми, які відповідають структурам, що їх він назвав структурами типу α-кератину, а в розтягнутому волоссі він одержав структури типу β-кератину. Структура α-кератину така сама, як і в α-спіралі (префікс α у терміні «α-спіраль» було обрано саме тому). Рентгенограми волосся показують, що поліпептидні α-спіралі не просто розташовані паралельно одна одній, а скручені подібно до трижильних або семижильних кабелів (рис. 15.6).
Волосся людини містить близько 12% цистину — подвійної амінокислоти, в молекулі якої дві амінокислотні групи з'єднані S—S-зв'язком. Часто два залишки цистину належать не одному поліпептидному ланцюгу, а двом сусіднім. Такі численні поперечні дисульфідні зв'язки утримують поліпептидні ланцюги разом; цим пояснюється нерозчинність кератину у воді, сольовому розчині та інших розчинниках. Якщо, однак, волосся обробити яким-небудь відновником, наприклад натрій сульфідом або алкілгідросульфідом, залишок цистину відновлюється з утворенням двох залишків цистеїну
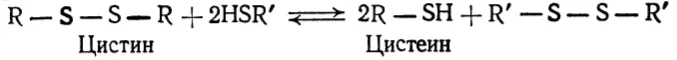
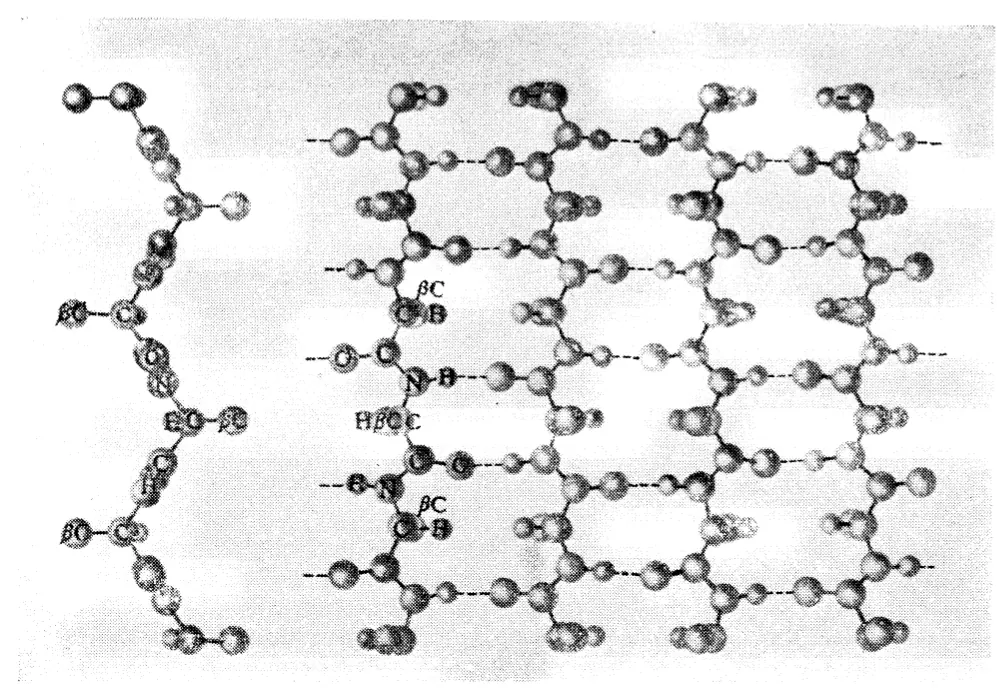
Рис. 15.4. Просторова модель складчастого шару з антипаралельним розташуванням поліпептидних ланцюгів.
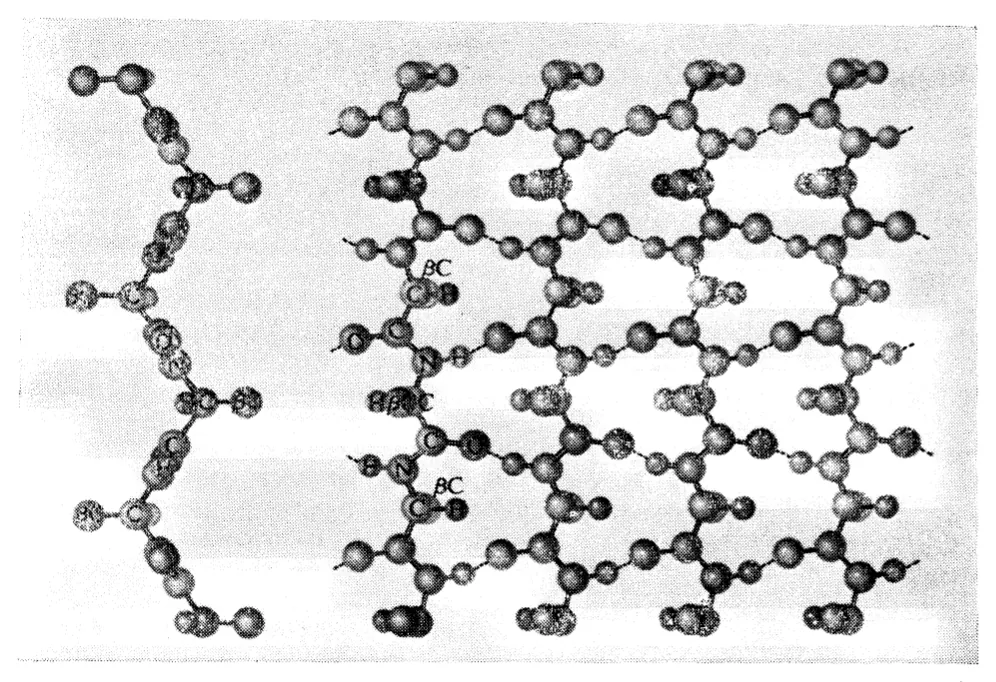
Рис. 15.5. Просторова модель складчастого шару з паралельним розташуванням поліпептидних ланцюгів.
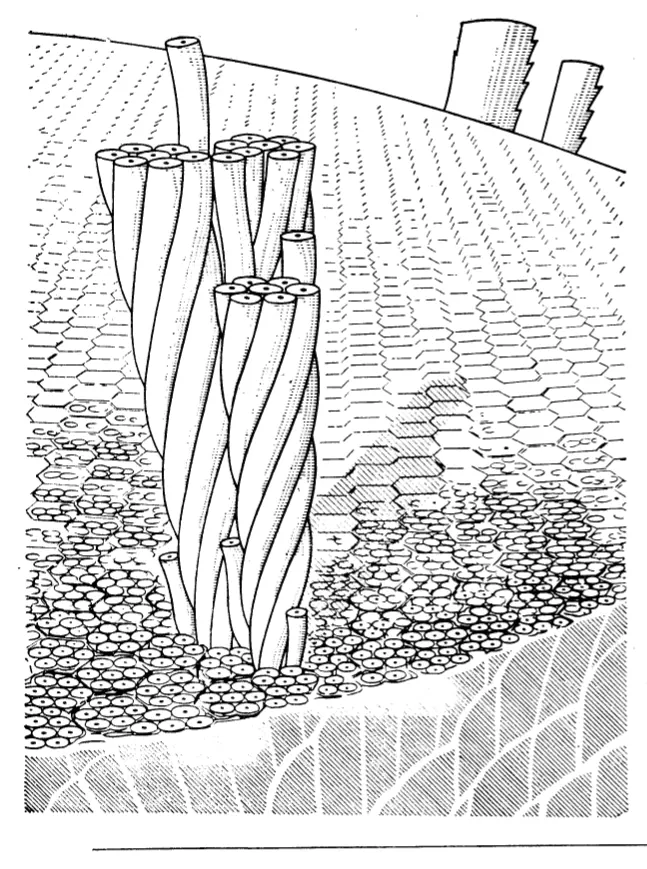
Рис. 15.6. Схема молекулярної структури волосся, нігтів, м'язів та інших тканин, утворених фібрилярними білками. Молекули білків мають конфігурацію α-спіралі (рис. 15.1); кожна молекула подана у вигляді стрижня круглого перерізу. Сім таких стрижнів утворюють «семижильний кабель». Навколо центральної α-спіралі закручено шість інших спіралей. Простір між «кабелями» заповнено додатковими α-спіралями. [From Campbell J. A., Chemical Systems, W. H. Freeman and Company, Copyright ©, 1970.]
У результаті такої обробки волосся стає м'яким, воно може, наприклад, завиватися, але під дією окисника знову твердне. Оскільки кератин нерозчинний, більшість тварин не може перетравлювати шерсть. Виняток становить платтяна міль, у травній системі якої присутні у високій концентрації гідросульфіди.
При руйнуванні частини дисульфідних зв'язків волосся можна розтягнути більш ніж удвічі порівняно з первісною довжиною. Рентгенограма такого волосся показує, що ланцюги кератину в ньому мають структуру типу складчастого шару. Мабуть, у цьому випадку сусідні поліпептидні ланцюги в шарі паралельні, тобто напрямлені в один бік (на амінокислотний залишок уздовж осі припадає 325 пм, у 2,17 раза більше, ніж в α-спіралі), а не антипаралельні (довжина залишку 350 пм у 2,33 раза більша, ніж в α-спіралі).
Фіброїн (білок шовку, що його виробляє тутовий шовкопряд і павук) має структуру типу складчастого шару з антипаралельним розташуванням ланцюгів. Встановлена експериментально довжина амінокислотного залишку вздовж осі волокна становить 348 пм, що добре узгоджується з розрахованим значенням 350 пм. Шовкова нитка тутового шовкопряда (Bombyx mori) містить 50% залишків гліцину, які чергуються з іншими залишками, головним чином аланіном (бічний ланцюг — метил) і серином (бічний ланцюг — оксиметил). У результаті з одного боку шару розташовані тільки атоми Гідрогену, з другого — більші бічні ланцюги — метил і оксиметил. Складчасті шари розташовані так, що стикаються однаковими поверхнями, внаслідок чого утворюються дві міжшарові відстані, що чергуються, — мала (шари стикаються атомами Гідрогену гліцину) і велика, як показано на рис. 15.7 (шари стикаються більшими бічними ланцюгами аланіну та серину). Інший тип ниток спостерігається в туси (шовк диких шовкопрядів). Вони містять лише 27% залишків гліцину, тому складчасті шари перебувають на однакових відстанях 530 пм, а не на різних, як у випадку ниток тутового шовкопряда.
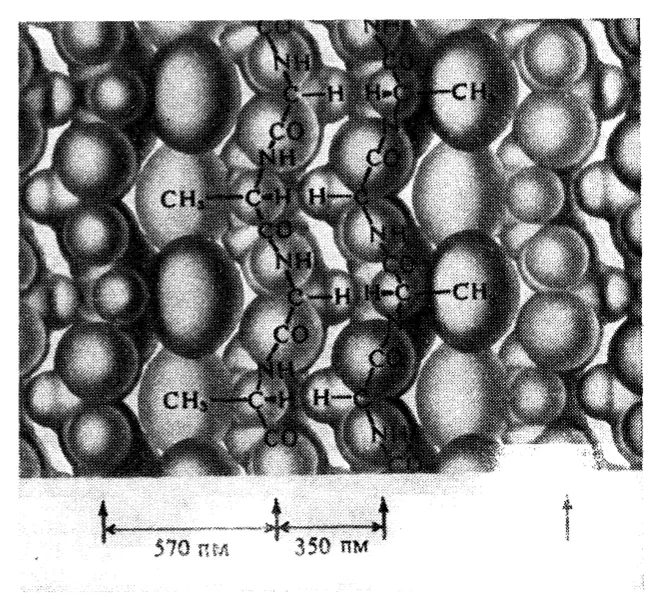
Рис. 15.7. Поперечний розріз нитки фіброїну — шовку тутового шовкопряда (Bombyx mori); стрілками показано чотири складчасті шари.
Колаген — основний фібрилярний білок шкіри, сухожилків, хрящів, кісток, рогівки ока, стінок артерій та інших тканин. Колагенові фібрили — важливий компонент міжклітинної речовини, що цементує клітини в тканинах (важливими сполучними речовинами є також гіалуронова кислота та інші мукополісахариди). Від більшості інших білків колаген відрізняється високим вмістом залишків проліну й оксипроліну, які становлять 25% усіх амінокислотних залишків, а також гліцину, залишки якого становлять 34%. У процесі синтезу колагену спочатку утворюється білок проколаген. Він не містить оксипроліну, і колаген утворюється з нього при гідроксилуванні приблизно половини залишків проліну. Для перебігу реакції гідроксилування потрібен вітамін С.
Кожний поліпептидний ланцюг колагену має довжину близько 280 нм і складається приблизно з 980 амінокислотних залишків. Якщо варити шкіру, кістки та інші сполучні тканини, то колаген, що міститься в них, гідролізується й розпадається на коротші поліпептидні ланцюги, які утворюють речовину, що називається желатиною. Желатина — добрий харчовий продукт, проте вона не містить триптофану й досить бідна на метіонін та деякі інші незамінні амінокислоти.
За структурою колаген відрізняється від інших фібрилярних білків. Кожний поліпептидний ланцюг має конформацію лівої спіралі, а три такі ланцюги утримуються разом водневими зв'язками й утворюють праву триниткову спіраль. Виходячи з цієї структури, можна зрозуміти, чому кожний третій амінокислотний залишок у поліпептидному ланцюгу колагену — гліцин: три ланцюги утримуються міжланцюговими водневими зв'язками так тісно, що простору між ними вистачає лише для бічного ланцюга, розміри якого не більші за атом Гідрогену. Щільно розташовані ланцюги атомів, з'єднані ковалентними зв'язками, забезпечують такому фібрилярному білку виняткову міцність — волокно сухожилків має майже таку саму межу міцності на розтяг, як і дріт із маловуглецевої сталі того самого діаметра. У сухожилках поліпептидні ланцюги витягнуті вздовж осі тканини, тоді як тканина рогівки ока утворена шарами, що чергуються, в яких ланцюги розташовані під прямими кутами один до одного.
Хіральність організмів
У підрозд. 14.3 уже було зазначено, що причина, через яку всі білки побудовані з L-амінокислот, а не із суміші L- і D-амінокислот, невідома. Проте будова складчастого шару та α-спіралі, які є основними вторинними структурами білків, дозволяє, мабуть, зрозуміти це явище. Обидва типи складчастого шару мають таку структуру, що один із двох зв'язків, які з'єднують α-атом Карбону з бічними групами, напрямлений назовні майже під прямим кутом до площини шару й забезпечує достатній простір для бічного ланцюга, тоді як інший зв'язок лежить майже в площині шару, де є місце лише для атома Гідрогену. В α-спіралі, побудованій цілком з L- (або цілком з D-) амінокислотних залишків, бічні групи (при перших атомах Карбону) розташовані на відстані понад 500 пм, тоді як у ланцюгах, побудованих із L- і D-залишків, ця відстань становить лише 350 пм. Відповідно в першому випадку структури стійкіші, оскільки для розміщення великих бічних груп є більше місця, ніж у випадку змішаних L,D-ланцюгів. Організми, побудовані виключно з L- (або D-) амінокислот (а також відповідних вуглеводів та інших речовин), до того ж незрівнянно простіші, ніж побудовані на основі одночасно і L-, і D-форм. Річ у тім, що ферменти, як правило, стереоспецифічні; фермент, який каталізує реакцію за участю субстрату L-ряду, не може каталізувати ту саму реакцію за участю субстрату D-ряду. Із цього випливає, що наявним організмам достатньо лише половини того числа ферментів, яке було б їм потрібне, якби вони були побудовані з L- і D-ізомерів. Відбір же L-, а не D-амінокислот був, мабуть, випадковим.