Лайнус Полинг, Питер Полинг - Химия
Одним из важных фибриллярных белков является кератин, из которого состоят волосы, ногти, рога, иглы дикобраза и т. д. Каждый по собственному опыту знает, что кератин (от греч. keros — рог) служит для животных прекрасным средством защиты, предохраняющим их от воздействия неблагоприятных факторов окружающей среды. Английский ученый в области молекулярной биологии У. Т. Эстбери (1898—1961) обнаружил в 1931 г., что волосы и другие кератины обычно дают характерные рентгенограммы, отвечающие структурам, которые он назвал структурами типа α-кератина, а в растянутых волосах он получил структуры типа β-кератина. Структура α-кератина та же, что и у α-спирали (приставка α в термине «α-спираль» была выбрана именно поэтому). Рентгенограммы волос показывают, что полипептидные α-спирали не просто расположены параллельно одна другой, но скручены подобно трех- или семижильным кабелям (рис. 15.6).
Волосы человека содержат около 12% цистина — двойной аминокислоты, в молекуле которой две аминокислотные группы соединены S—S-связью. Часто два остатка цистина принадлежат не одной полипептидной цепи, а двум соседним. Такие многочисленные поперечные дисульфидные связи удерживают полипептидные цепи вместе; этим объясняется нерастворимость кератина в воде, солевом растворе и других растворителях. Если, однако, волосы обработать каким-либо восстановителем, например сульфидом натрия или алкилгидросульфидом, остаток цистина восстанавливается с образованием двух остатков цистеина
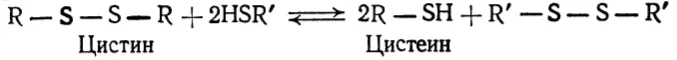
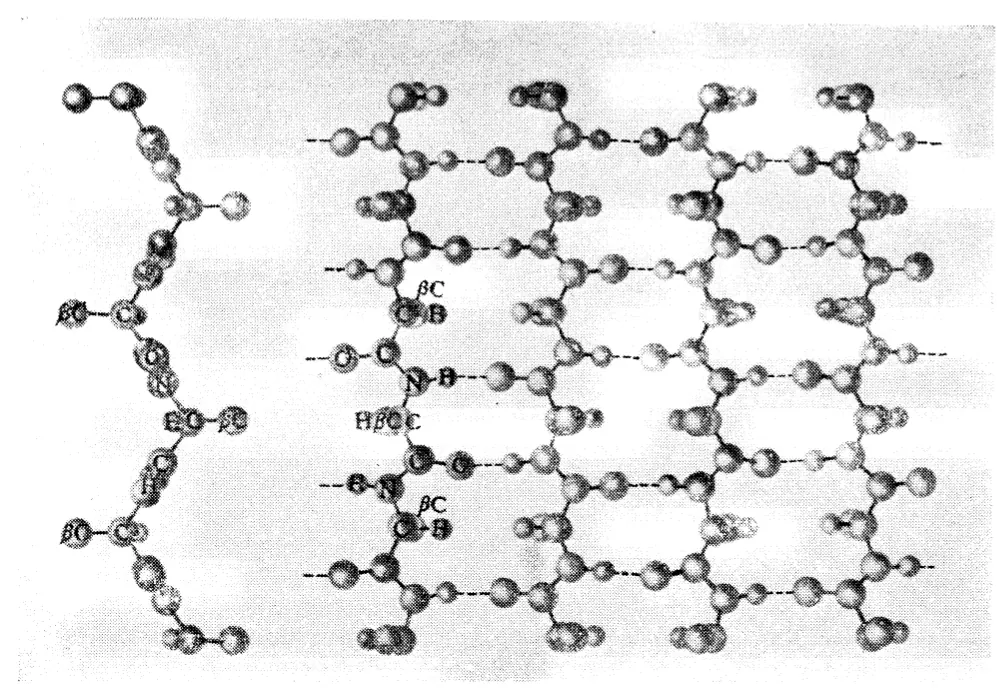
Рис. 15.4. Пространственная модель складчатого слоя с антипараллельным расположением полипептидных цепей.
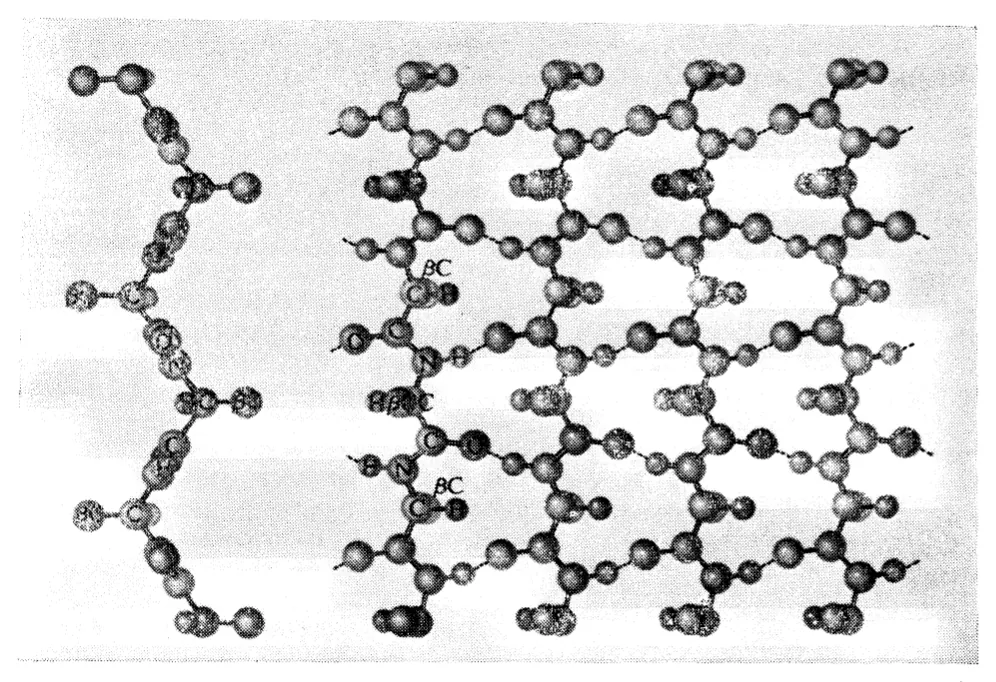
Рис. 15.5. Пространственная модель складчатого слоя с параллельным расположением полипептидных цепей.
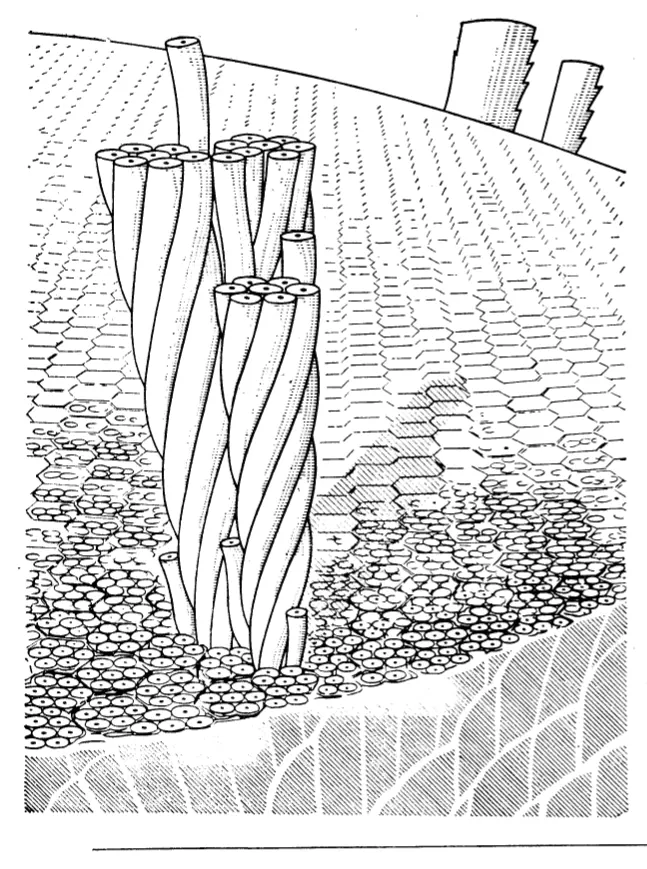
Рис. 15.6. Схема молекулярной структуры волос, ногтей, мышц и других тканей, образованных фибриллярными белками. Молекулы белков имеют конфигурацию α-спирали (рис. 15.1); каждая молекула представлена в виде стержня круглого сечения. Семь таких стержней образуют «семижильный кабель». Вокруг центральной α-спирали закручено шесть остальных спиралей. Пространство между «кабелями» заполнено дополнительными α-спиралями. [From Campbell J. A., Chemical Systems, W. H. Freeman and Company, Copyright ©, 1970.]
В результате такой обработки волосы становятся мягкими, они могут, например, завиться, но под действием окислителя опять затвердевают. Так как кератин нерастворим, большинство животных не может переваривать шерсть. Исключение составляет платяная моль, в пищеварительной системе которой присутствуют в высокой концентрации гидросульфиды.
При разрушении части дисульфидных связей волосы можно растянуть более, чем в два раза по сравнению с первоначальной длиной. Рентгенограмма таких волос показывает, что цепи кератина в них имеют структуру типа складчатого слоя. По-видимому, в этом случае соседние полипептидные цепи в слое параллельны, т. е. направлены в одну сторону (на аминокислотный остаток вдоль оси приходится 325 пм, в 2,17 раза больше, чем в α-спирали), а не антипараллельны (длина остатка 350 пм в 2,33 раза больше, чем в α-спирали).
Фиброин (белок шелка, вырабатываемый тутовым шелкопрядом и пауком) имеет структуру типа складчатого слоя с антипараллельным расположением цепей. Установленная экспериментально длина аминокислотного остатка вдоль оси волокна составляет 348 пм, что хорошо согласуется с рассчитанным значением 350 пм. Шелковая нить тутового шелкопряда (Bombyx mori) содержит 50% остатков глицина, которые чередуются с другими остатками, главным образом аланином (боковая цепь — метил) и серином (боковая цепь — оксиметил). В результате с одной стороны слоя располагаются только атомы водорода, с другой — более крупные боковые цепи — метил и оксиметил. Складчатые слои расположены так, что соприкасаются одинаковыми поверхностями, в результате чего образуются два чередующихся межслоевых расстояния — малое (слои соприкасаются атомами водорода глицина) и большое, как показано на рис. 15.7 (слои соприкасаются более крупными боковыми цепями аланина и серина). Другой тип нитей наблюдается у туссы (шелк диких шелкопрядов). Они содержат только 27% остатков глицина, поэтому складчатые слои находятся на одинаковых расстояниях 530 пм, а не на разных, как в случае нитей тутового шелкопряда.
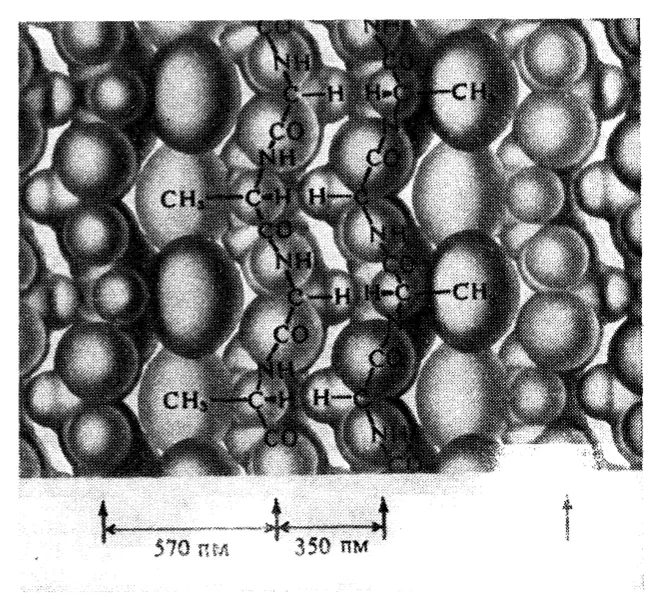
Рис. 15.7. Поперечный разрез нити фиброина — шелка тутового шелкопряда (Bombyx mori); стрелками показаны четыре складчатых слоя.
Коллаген — основной фибриллярный белок кожи, сухожилий, хрящей, костей, роговицы глаза, стенок артерий и других тканей. Коллагеновые фибриллы — важный компонент межклеточного вещества, цементирующего клетки в тканях (важными связующими веществами являются также гиалуроновая кислота и другие мукополисахариды). От большинства других белков коллаген отличается высоким содержанием остатков пролина и оксипролина, которые составляют 25% всех аминокислотных остатков, а также глицина, остатки которого составляют 34%. В процессе синтеза коллагена вначале образуется белок проколлаген. Он не содержит оксипролина и коллаген образуется из него при гидроксилировании примерно половины остатков пролина. Для протекания реакции гидроксилирования необходим витамин С.
Каждая полипептидная цепь коллагена имеет длину около 280 нм и состоит примерно из 980 аминокислотных остатков. Если варить кожу, кости и другие соединительные ткани, то содержащийся в них коллаген гидролизуется и распадается на более короткие полипептидные цепи, образующие вещество, называемое желатиной. Желатина — хороший пищевой продукт, однако она не содержит триптофана и довольно бедна метионином и некоторыми другими незаменимыми аминокислотами.
По структуре коллаген отличается от других фибриллярных белков. Каждая полипептидная цепь имеет конформацию левой спирали, а три такие цепи удерживаются вместе водородными связями и образуют правую трехнитевую спираль. Исходя из этой структуры, можно понять, почему каждый третий аминокислотный остаток в полипептидной цепи коллагена — глицин: три цепи удерживаются межцепочечными водородными связями так тесно, что пространство между ними достаточно лишь для боковой цепи, размеры которой не больше атома водорода. Расположенные плотно цепи атомов, соединенные ковалентными связями, обеспечивают такому фибриллярному белку исключительную прочность — волокно сухожилий имеет почти такой же предел прочности на растяжение, как и проволока из малоуглеродистой стали того же диаметра. В сухожилиях полипептидные цепи вытянуты вдоль оси ткани, в то время как ткань роговицы глаза образована чередующимися слоями, в которых цепи расположены под прямыми углами одна относительно другой.
Хиральность организмов
В разд. 14.3 уже было отмечено, что причина, по которой все белки построены из L-аминокислот, а не из смеси L- и D-аминокислот, неизвестна. Тем не менее строение складчатого слоя и α-спирали, которые являются основными вторичными структурами белков, позволяет, по-видимому, понять это явление. Оба типа складчатого слоя имеют такую структуру, что одна из двух связей, соединяющих α-атом углерода с боковыми группами, направлена вовне почти под прямым углом к плоскости слоя и обеспечивает достаточное пространство для боковой цепи, между тем как другая связь лежит почти в плоскости слоя, где есть место лишь для атома водорода. В α-спирали, построенной целиком из L- (или целиком из D-) аминокислотных остатков, боковые группы (при первых атомах углерода) расположены на расстоянии более 500 пм, тогда как в цепях, построенных из L- и D-остатков, это расстояние составляет только 350 пм. Соответственно в первом случае структуры более устойчивы, так как для размещения больших боковых групп имеется больше места, чем в случае смешанных L,D-цепей. Организмы, построенные исключительно из L- (или D-) аминокислот (а также соответствующих углеводов и других веществ), к тому же несравненно проще, чем построенные на основе одновременно и L- и D-форм. Дело в том, что ферменты, как правило, стереоспецифичны; фермент, катализирующий реакцию с участием субстрата L-ряда, не может катализировать ту же реакцию с участием субстрата D-ряда. Из этого следует, что существующим организмам достаточно только половины того числа ферментов, которое бы им потребовалось, если бы они были построены из L- и D-изомеров. Отбор же L-, а не D-аминокислот был, по-видимому, случайным.