Лайнус Полинг, Питер Полинг - Химия
Животные отличаются от растений способностью свободно передвигаться. Передвижение осуществляется при помощи мышц. Мышечное волокно может иметь 10—1000 мкм в диаметре и достигать длины до 35 см (портняжная мышца человека).
Сокращение мышцы происходит в результате взаимодействия белковых молекул. Изображение структурной единицы мышечного волокна (саркомера), полученное методом электронной микроскопии, приведено на рис. 15.8. В центре каждого саркомера находится набор филаментов (нитей) белка миозина; диаметр филамента примерно 16 нм, длина — около 1500 нм. В промежутках между филаментами с обоих концов расположены более мелкие филаменты другого белка — актина, диаметром примерно 7 нм и длиной около 1000 нм. Филаменты актина прикреплены к пластинкам, каждая из которых разделяет два соседних саркомера, так, как показано на рис. 15.8. В мышцах позвоночных животных филаментов актина в четыре раза больше, чем филаментов миозина. На рис. 15.9 приведена электронная микрофотография (×100 000) поперечного разреза ножной мышцы лягушки; на фотографии видно, что тонких филаментов в два раза больше, чем толстых. (На другом конце толстого филамента имеется еще один набор тонких филаментов.) Центры толстых филаментов отстоят друг от друга примерно на 45 нм, а наименьшее расстояние между поверхностями тонкого и толстого филаментов составляет около 15 нм.
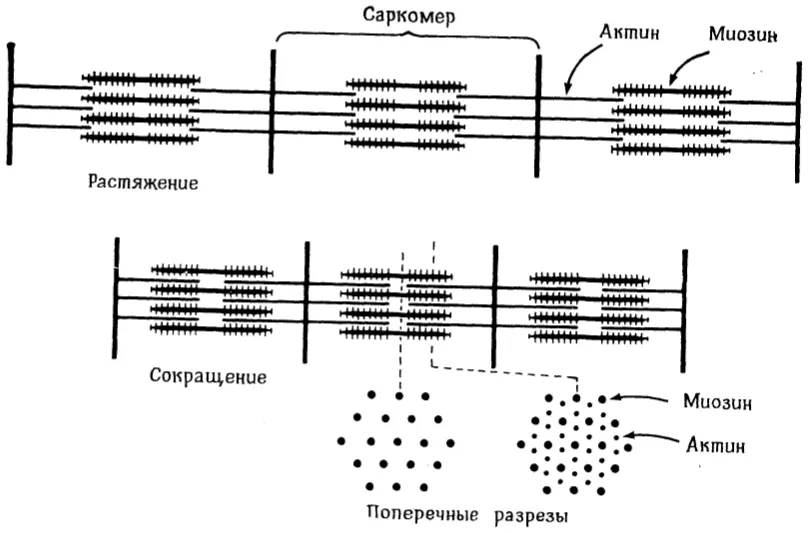
Рис. 15.8. Схема строения мышцы.
Филаменты актина могут диссоциировать на глобулярные молекулы с молекулярной массой примерно 58 000. В самом филаменте эти молекулы агрегированы в две цепи, которые скручены в двойную спираль (рис. 15.10). Филаменты миозина также могут диссоциировать на отдельные молекулы миозина с молекулярной массой около 525 000. При помощи электронного микроскопа установлено, что они имеют форму стержней длиной 200 нм и диаметром 2,0 нм; на одном конце такого стержня расположена головка длиной 20 нм и диаметром 4 нм. Рентгенограммы показывают, что вторичная структура таких стержней представляет собой α-спираль, причем стержень, вероятно, состоит из двух скрученных цепей, имеющих конформацию α-спирали. Каждый филамент миозина состоит примерно из 600 молекул. Электронные микрофотографии и рентгенограммы показывают, что молекулы расположены в филаменте почти параллельно друг другу, причем их хвосты переплетены, а головки выступают над поверхностью стержня. Головки ориентированы в сторону ближайшего конца филамента, так что его средняя часть на протяжении примерно 200 нм свободна от них. Головки содержат около 300 аминокислотных остатков в каждой из двух цепей. Каждая цепь головки в форме α-спирали имеет длину 45 нм (для растянутой структуры это значение больше) и легко «достает» до примыкающего филамента актина.
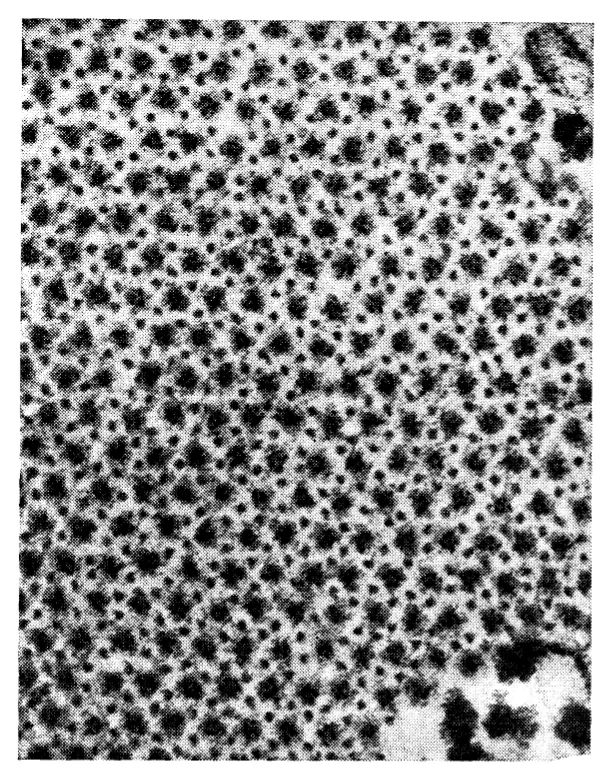
Рис. 15.9. Электронная микрофотография поперечного разреза ножной мышцы лягушки (×100 000).
[Courtesy of H. E. Huxley.]
Электронные микрофотографии филамента актина в присутствии молекул миозина показывают, что молекулы миозина прикрепляются к филаменту актина так, что все их хвосты вытягиваются в направлении одного конца филамента.
Эти данные согласуются с представлениями о мышечном сокращении, которые проиллюстрированы на рис. 15.10. Каждый филамент миозина имеет около 1800 выступающих концевых участков цепей (головок). На каждой молекуле актина, входящей в актиновый филамент, имеются участки, комплементарные определенным участкам на головках молекул миозина и способные взаимодействовать с ними с образованием слабой связи (см. разд. 15.5). Комплементарность может быть нарушена в результате изменений в структуре взаимодействующих участков, причем это изменение может быть вызвано каким-либо источником энергии. При стимуляции сокращения мышцы комплементарные участки начинают соединяться. Цепи миозина вытягиваются вдоль филамента актина, причем каждая цепь движется к следующему месту связывания, в результате чего филамент актина все дальше втягивается между нитями миозина, и таким образом происходит сокращение саркомера.
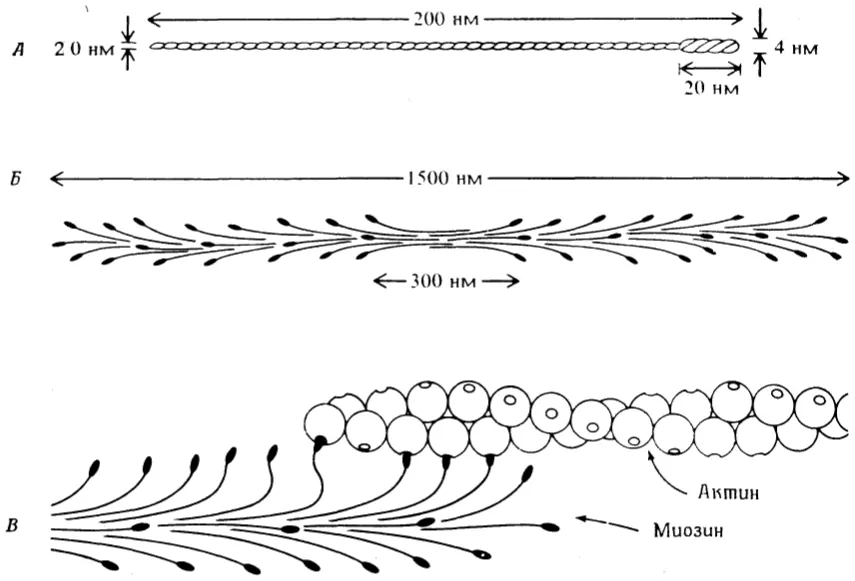
Рис. 15.10. А — молекула миозина; Б — филамент миозина; В — схема передвижения филамента миозина вдоль филамента актина. Передвижение осуществляется благодаря взаимодействию связывающих групп, расположенных в головках миозина, с комплементарными участками молекул актина.
В период расслабления мышцы реакция с АТФ изменяет структуру участков связывания, нарушает комплементарность и филаменты актина выдвигаются из промежутков между нитями миозина.
Пока еще отсутствуют детальные представления о природе взаимодействующих групп актина и миозина. В 1 см3 мышцы содержится ~0,1 г миозина и 0,04 г актина, или 0,6·10−6 моля миозиновых цепей (три на молекулу) и 0,7·10−6 моля актина. Примерное соответствие между этими числами подтверждает вполне допустимое предположение о том, что один участок связывания приходится на одну цепь миозина и на одну молекулу актина.
Сила мышечного сокращения составляет примерно 3,5 кг на 1 см2 поперечного сечения, а сократимость волокон около 33%. Следовательно, работа, выполняемая 1 см3 мышц при сокращении, равна примерно 0,1 Дж, что соответствует 143 кДж·моль−1 актина. Такая величина, в несколько раз превышающая энергию, обеспечиваемую одной молекулой АТФ, заставляет предположить, что реакция протекает в несколько стадий.