Лайнус Полинг, Питер Полинг - Химия
Первой ступенью в эволюции жизни на Земле была, вероятно, эволюция молекул. В водном растворе содержалось множество мелких молекул, которые беспорядочно образовывались под действием солнечного света, разрядов молний и других источников энергии и обладали способностью катализировать реакции, приводившие к синтезу копий самих себя. По-видимому, этот процесс проходил в две стадии: во-первых, под влиянием каталитического действия (как на матрице) шло образование молекулы, комплементарной по структуре первоначальной молекуле, а затем эта вторая молекула служила матрицей для образования новой молекулы, которая была идентична первоначальной молекуле. Тот факт, что такой двухстадийный процесс репликации (или эквивалентный ему одностадийный процесс репликации молекулы, состоящей из двух комплементарных частей) осуществляется в настоящее время нуклеиновыми кислотами при репликации генов, позволяет предположить, что первыми самовоспроизводящимися молекулами на Земле были действительно молекулы нуклеиновой кислоты. Учитывая важную роль, которую белки играют в живых организмах, полагали, что именно они должны были быть первыми самоудваивающимися молекулами, однако существующие в этом отношении данные говорят в пользу нуклеиновых кислот.
Следующей ступенью в эволюции жизни могло быть возникновение процесса синтеза белков, направляемого нуклеиновыми кислотами. До тех пор, однако, пока молекулы свободно переходили в окружающую водную среду, существовала лишь небольшая вероятность для развития процессов синтеза молекул различных видов. Только после того, как начали формироваться клетки (содержащие определенное количество воды с растворенными в ней различными веществами, которые удерживала от перехода в окружающую среду клеточная мембрана), процесс молекулярной эволюции вовлек в конце концов десятки тысяч веществ, участвующих в десятках тысяч каталитических реакций.
В последние годы появилось много сведений о строении биологических мембран. Важные данные были получены отчасти благодаря биохимическим методам (выделение различных химических соединений из клеточных мембран), рентгеноструктурному анализу, электронному и ядерному магнитному резонансу, спектроскопии, но в основном благодаря применению электронного микроскопа. Клеточные мембраны, такие, как мембрана эритроцита, состоят из примерно равных количеств липидов и белков. В них присутствует также небольшое количество (несколько процентов) полисахаридов, которые соединяются с полипептидными цепями с образованием гликопротеидов.
Основные свойства мембран в значительной степени определяются природой входящих в их состав фосфолипидов. Молекулы этих веществ на одном конце несут электрические заряды и группы, образующие водородные связи, на другом — углеводородные цепи. Полярные концы гидрофильны и образуют поверхность мембраны, тогда как углеводородные концы, выталкиваемые из водной фазы, ориентируются по направлению к другим углеводородам. В результате образуется двойной слой толщиной примерно 8 нм и строением, приведенным на рис. 15.27.
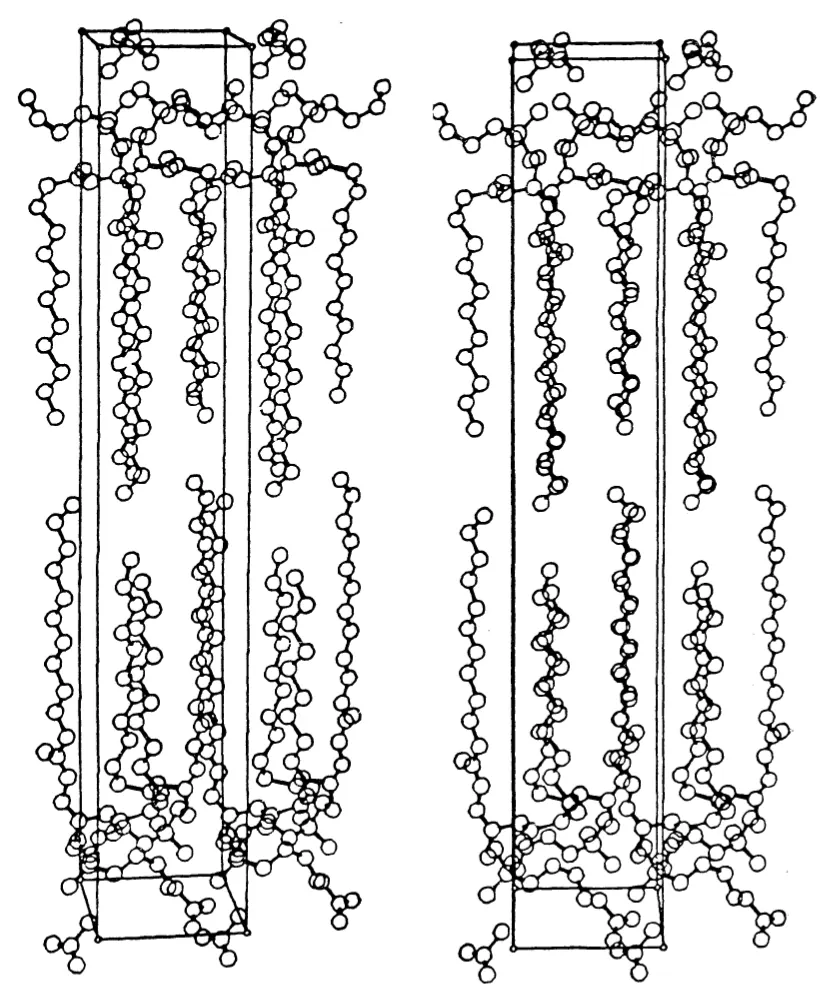
Рис. 15.27. Стереоскопическое изображение пространственной модели структуры кристаллической 1,2-дилаурилфосфатидилэтаноламиноуксусной кислоты.
[From Hitchcock P. B., Mason R., Thomas K. M., J. Chem. Soc., London, Comm., 1974, 539.]
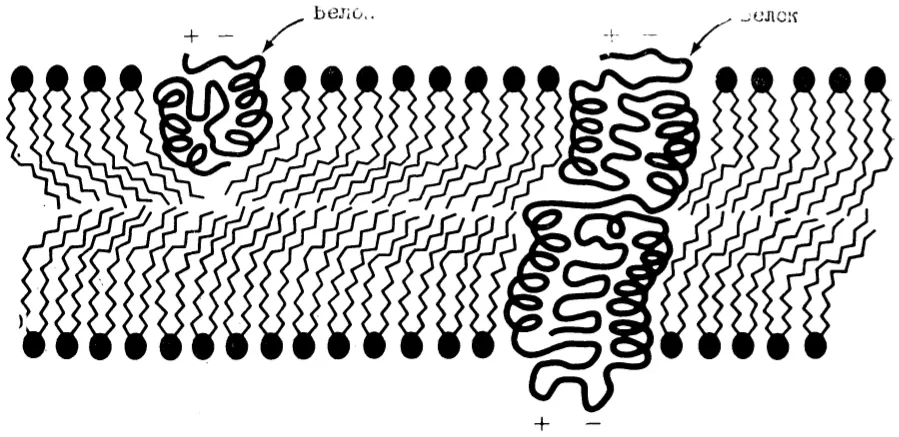
Рис. 15.28. Схематическое изображение строения клеточной мембраны. Показаны молекулы липидов и белков.
В фосфолипидах, структура которых показана на рис. 15.27, боковые цепи представлены остатками лауриловой кислоты, не содержащими двойных связей. В биологических мембранах присутствуют углеводородные боковые цепи нескольких видов (разд. 13.5). Углеводородные боковые цепи с двойной связью и с цис-конфигурацией при двойной связи изогнуты. Получены данные, свидетельствующие о том, что в биологических мембранах углеводородные цепи располагаются перпендикулярно по отношению к каждой из двух поверхностей на некотором участке, а затем изгибаются под углом примерно 30°. Кроме того, было обнаружено, что строение мембраны хорошо фиксировано лишь непосредственно у ее поверхностей (рис. 15.27), тогда как концы цепей двигаются довольно свободно, так что структура средней части мембраны приближается к структуре жидкости, а структура у поверхностей — к кристаллу.
Кроме того, молекулы белков соединены с мембраной по-разному. По-видимому, некоторые молекулы белков вытянуты от одной поверхности мембраны до другой и могут обеспечивать перенос молекул и ионов из внешней среды внутрь клетки или в обратном направлении (рис. 15.28).