Лайнус Полинг, Питер Полинг - Химия
В 1902 г. английский врач А. Е. Гаррод (1857—1936) исследовал больных, у которых моча темнела при стоянии на воздухе, и обнаружил, что изменение цвета вызвано присутствием в моче гомогентизиновой кислоты, или 2,5-диоксифенилуксусной кислоты. Он описал это явление как «врожденную ошибку обмена веществ». Позднее было установлено, что это результат генетической мутации: фермент, который превращает гомогентизиновую кислоту в теле здорового человека в другие вещества, у больных или не синтезируется совсем или, возможно, синтезируется в измененной форме, не обладающей каталитической активностью. В 1949 г. была открыта причина другой генетической болезни — серповидноклеточной анемии, которая обусловлена присутствием в организме мутантного гена, детерминирующего синтез аномальной полипептидной цепи гемоглобина. В β-цепи молекулы гемоглобина у больных серповидноклеточной анемией происходит замена одного аминокислотного остатка глутаминовой кислоты на валин, что уже было описано в разд. 15.6. Поскольку появление аномальных молекул гемоглобина влечет за собой болезнь, серповидноклеточная анемия была названа молекулярной болезнью. С 1949 г. обнаружены сотни молекулярных болезней. Для многих из них установлена природа генной мутации и соответствующее изменение в структуре молекулы белка, зависимого от мутировавшего гена. Для ряда таких болезней обнаружение нарушения на молекулярном уровне позволило практически полностью объяснить симптомы заболевания.
Примером молекулярной болезни, причина которой ныне совершенно ясна, может служить ферригемоглобинемия. Это заболевание связано с тем, что в аномальной молекуле гемоглобина два атома из четырех атомов железа(II) легко окисляются до состояния железа(III), в то время как два других атома остаются в двухзарядном состоянии. Соединение гемоглобина с молекулами кислорода в легких и их освобождение в тканях может проходить только в том случае, если атом железа двухзаряден. Если атомы железа окисляются до трехзарядного состояния, теряется способность обратимо соединяться с кислородом, и кровь больного имеет вдвое меньшую кислородную емкость, чем кровь здорового человека.
Прежде всего необходимо объяснить, почему соединения железа(II) устойчивы в нормальном гемоглобине. Большинство соединений, содержащих железо(II), легко окисляются кислородом воздуха до соответствующих соединений железа(III), но нормальный гемоглобин устойчив к такому окислению, если молекула гемоглобина не денатурирована. Расшифровка структуры миоглобина и гемоглобина методом рентгеноструктурного анализа позволила объяснить специфическую устойчивость железа(II) в гемоглобине. Было обнаружено, что в положении 58 α-цепи гемоглобина и в положении 63 β-цепи находится остаток аминокислоты гистидина, причем его имидазольное кольцо жестко закреплено вблизи от атома железа гем-группы. Имидазольное кольцо имеет свойства основания и при нормальном pH (около 7) притягивает протон из раствора, образуя ион имидазолия C3N2H4+ или C₃N₂H₅⁺ (по мнению редакции сайта) (рис. 15.29). Положительный электрический заряд этого иона образует электростатическое поле вблизи атома железа, в результате чего соответственно снижается способность атома железа(II) отдавать электрон и превращаться в атом железа(III). Этим электростатическим эффектом иона имидазолия и объясняется необычная устойчивость атома железа(II) в нормальном гемоглобине.
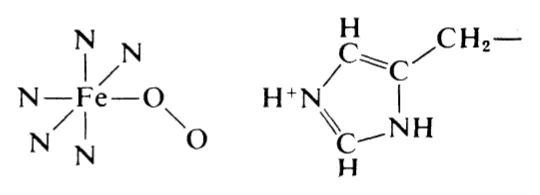
Рис. 15.29. Взаимное расположение иона имидазолия остатка гистидина и атома железа в гемоглобине. Положительный заряд имидазолия сохраняет ион Fe2+.
У человека существует, однако, несколько известных мутаций, изменяющих аминокислотную последовательность в α-цепи или в β-цепи гемоглобина так, что легкость, с которой окисляется атом железа, возрастает, в результате чего и развивается ферригемоглобинемия. Одна из таких мутаций приводит к замене остатка гистидина в положении 58 α-цепи на остаток тирозина. Боковая цепь тирозина содержит оксибензольное кольцо, которое, обладая свойствами кислоты, не притягивает протона и не приобретает положительного заряда. Электростатическое поле, удерживающее электрон железа, в этом случае не образуется, и железо(II) гем-групп в двух цепях молекулы гемоглобина окисляется до железа(III). Возникающее заболевание называют ферригемоглобинемией по α-цепям.
Известна также ферригемоглобинемия по β-цепям, при которой тирозин замещает гистидиновый остаток в положении 63 β-цепи.
Эти данные о характере замещения аминокислот в α- или в β-цепи позволили объяснить природу болезни, которая выражается в том, что атомы железа(II) приобретают способность окисляться до состояния железа(III). Вскрытие молекулярных причин болезни дает возможность разработать методы, предотвращающие ее проявление. Если каким-либо способом ввести положительный заряд в соответствующую часть молекулы гемоглобина и тем самым понизить возможность перехода атома железа(II) в состояние железа(III), то развитие болезни можно предотвратить. Другой путь, позволяющий влиять на ход болезни, не требует детального знания ее молекулярного механизма, а основан на учете того факта, что заболевание связано с окислением атома железа. Тогда, повышая концентрацию в крови какого-либо восстановителя, например аскорбиновой кислоты (витамина С), можно изменить окислительно-восстановительные условия в организме так, чтобы они способствовали восстановлению железа(III) до железа(II).
Изложенные выше соображения были подтверждены данными, полученными при изучении другой молекулярной аномалии. Если остаток гистидина в положении 58 α-цепи или в положении 63 β-цепи замещается остатком аргинина, то развивается другая, менее опасная по своим проявлениям болезнь. Аномалия в этом случае не приводит к ферригемоглобинемии — атомы железа остаются двухзарядными. Причина здесь в том, что боковая цепь аргинина содержит гуанидиновую группу, которая при pH 7 захватывает протон и превращается в ион гуанидиния, несущий положительный заряд. Электростатическое поле, создаваемое им, удерживает атом железа в состоянии железа(II).
Молекулярные болезни открыты только примерно 25 лет назад, и с каждым годом тонкие молекулярные механизмы, лежащие в их основе, становятся все более понятными. Дальнейшие исследования в этом направлении должны привести к значительным успехам в борьбе с болезнями, а значит, и к уменьшению страданий человека.
Упражнения
15.1. Какое расстояние занимает один аминокислотный остаток вдоль оси α-спирали? Вдоль полипептидной цепи в структуре типа параллельного складчатого слоя? Используя эти цифры, рассчитайте, насколько увеличивается длина волоса при его растяжении после обработки паром или восстановителем.
15.2. Почему волос после обработки восстановителем растягивается легче, чем до обработки?
15.3. Какие особенности структуры шелка тутового шелкопряда Bombyx mori связаны с тем фактом, что половину аминокислотных остатков этого шелка составляют остатки глицина?
15.4. Объясните, почему структуры типа складчатого слоя могут быть построены только из L- или только из D-аминокислотных остатков, но не из смеси тех и других?
15.5. Начертите схему структуры саркомера и объясните, как происходит сокращение мышечного волокна.
15.6. В разд. 15.4 сказано, что эффективная кислородная емкость гемоглобина с независимо функционирующими гемами (парциальное давление кислорода в легких 0,15 атм, в тканях — 0,04) составляет только 32% максимальной.
а) Проверьте это, используя уравнение равновесия.
б) Какова эффективная кислородная емкость гемоглобина в случае очень сильного гем-гем-взаимодействия? [Ответ: 87%.]
в) Почему такой гемоглобин не был найден в природе?
15.7. Какое значение с физиологической точки зрения имеет тот факт, что миоглобин достигает 50% насыщения кислородом при меньшем парциальном давлении кислорода, чем гемоглобин? (См. рис. 15.12.)
15.8. Какие экспериментальные данные позволяют сделать вывод, что в молекуле антитела имеются два связывающих участка, каждый из которых способен соединяться с гаптеновой группой?
15.9. Если раствор овальбумина добавить к соответствующей антисыворотке (от кролика, которому вводили овальбумин), то образуется осадок. Если продолжать добавлять раствор овальбумина, осадок растворится. Можно ли объяснить эти факты?
15.10. На рис. 15.19 показан ион сукцинанилата, причем цепь сукцината изогнута, а не вытянута на максимально возможную длину. Такая изогнутая конформация подтверждается следующими данными: ион анилата малеиновой кислоты соединяется с антителом к сукцинанилату гораздо прочнее, чем ион анилата фумаровой кислоты. (Анилат малеиновой кислоты C6H5NHCOCH=CHCO2− имеет цис-конфигурацию у двойной связи, а его изомер — анилат фумаровой кислоты — транс-конфигурацию.) Можно ли аргументировать эти данные?
15.11. Чаргафф установил, что ДНК различных организмов содержит разные количества четырех нуклеотидов A, T, G и C, но в каждой ДНК всегда количество A равно T, а количество G равно C. Как объяснить этот факт?
15.12. Почему эксперимент Мезельсона и Шталя свидетельствовал в пользу существования двойной спирали и постулированного механизма репликации генов?
15.13. Расстояния между атомами кислорода и азота, связанными водородными связями в комплементарных парах оснований ДНК (см. рис. 15.20), равны 280—300 пм. Энергия водородной связи уменьшается в два раза при увеличении расстояния на каждые 20 пм. Насколько вандерваальсов контакт между двумя центральными NH-группами раздвигает основания в нестабильной паре GT (по сравнению с комплементарными парами)? Насколько слабее в этом случае будет водородная связь? (Ответ: примерно на 100 пм.)
15.14. Опишите структуру биологической мембраны.
15.15. Почему ферригемоглобинемия возникает при замещении остатка гистидина в положении 58 α-цепи или в положении 63 β-цепи гемоглобина на остаток тирозина? Почему эта болезнь не развивается при замене гистидина аргинином?