Лайнус Полінг, Пітер Полінг — Хімія
Людина, заражена віспою, може померти внаслідок порушень, які спричиняє вірус віспи, що розмножується в клітинах організму. Якщо організм виживає, він набуває проти віспи імунітету, який зберігається до кінця життя, проте не захищає його від інших вірусних захворювань. Імунітет забезпечується специфічними білковими молекулами — антитілами, які виробляються в організмі у відповідь на ін'єкцію певних молекул. Молекули (у випадку віспи — вірусні частинки), що стимулюють утворення антитіл в організмі, називаються антигенами.
У людини антитілами є гамма-глобуліни — білки, що містяться в сироватці крові. Їхня молекулярна маса становить приблизно 150 000. Антигенами для людини чи тварини можуть правити чужорідні білки та полісахариди, коли вони потрапляють в організм. Невеликі молекули можуть бути приєднані до білків і введені в організм, щоб викликати утворення антитіл, здатних специфічно зв'язуватися з ними. Так, якщо n-амінобензойну кислоту H2NC6H4COOH обробити хлоридною кислотою і натрій нітратом або натрій нітритом (на думку редакції сайту), утворюється іон діазонію :N≡+N—C6H4COOH, який може реагувати з деякими бічними групами поліпептидного ланцюга білка. Азобілки, що отримуються таким чином, несуть групу азобензоату —NNC6H4COO−. Антитіла, які виробляються у відповідь на ін'єкцію такого азобілка в організм тварини, можуть мати меншу здатність до зв'язування вихідного білка і більшу — до сполучення зі зв'язаним з білком азобензоатом (група азобензоату називається гаптеновою групою або гаптеном, від грецького слова haptein — охоплювати, хапатися за щось). Антисироватка (сироватка крові тварини, імунізованої азобілком) спричиняє утворення осаду з будь-яким білком, до якого приєднані групи азобензоату, та аглютинацію (злипання) клітин, що несуть ці групи. Антисироватка не утворює осаду з вільним іоном бензоату. Навпаки, іон бензоату у досить високих концентраціях перешкоджає осадженню гомологічного* азобілка й аглютинації «азоклітин» антисироваткою.
Ці факти можна пояснити, якщо припустити, що в молекулі антитіла є дві або кілька ділянок для зв'язування антигена. На поверхні молекули азобілка є кілька гаптенових груп, завдяки чому молекули антитіла зв'язують молекули азобілка в сітчастий агрегат, який і становить основу імунного преципітату (рис. 15.17). Молекула антитіла, зв'язана лише з гаптеном, залишається в розчині, і реакції преципітації не відбувається, навіть якщо гаптени стикаються з ділянками зв'язування на антитілі. Проте було показано, що така речовина, як діазобензоат-о-крезол
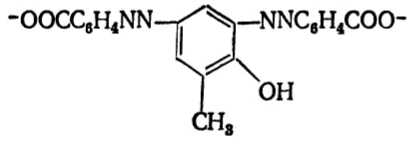
що містить дві гаптенові групи в молекулі, утворює преципітат з антисироваткою до азобензоату. Крім того, виявилося, що преципітат містить однакове число молекул цієї дигаптенової речовини та антитіла, і, отже, молекули антитіла, яке спричиняє преципітацію й аглютинацію, мають дві зв'язувальні ділянки.
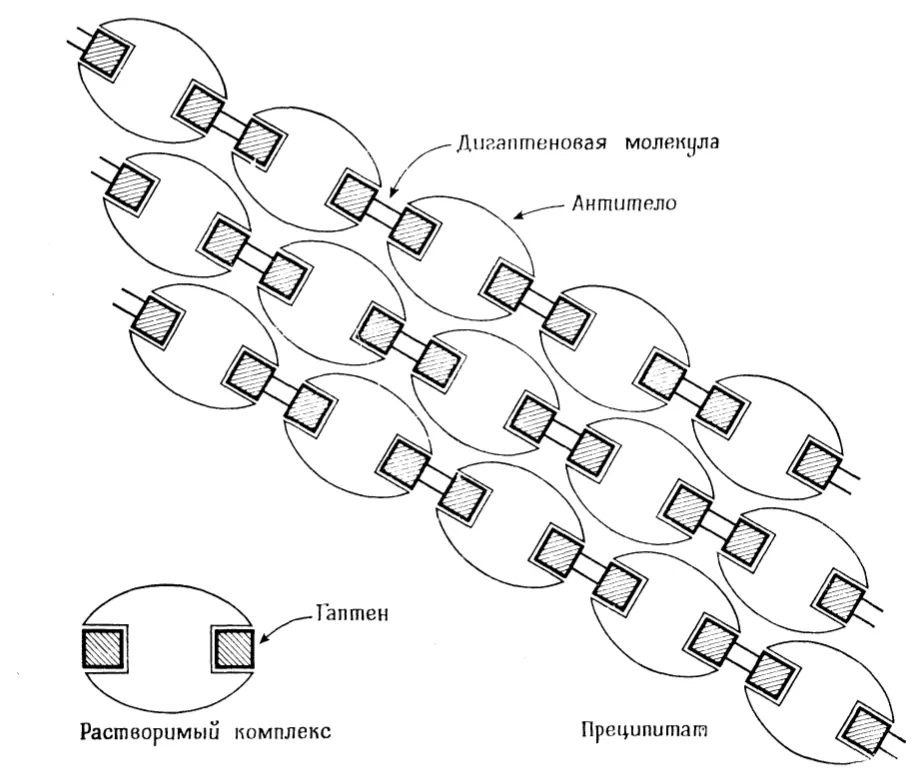
Рис. 15.17. Схематичне зображення розчинного комплексу «двовалентного» антитіла з двома гаптенами та структури преципітату, утвореного антитілом і дигаптеновою речовиною.
* Гомологічними називають білки, що виконують у різних організмів одні й ті самі функції. — Прим. перекл.
Структура антитіл
Як було встановлено, головним чином роботами Р. Портера в Англії та Г. Едельмана в США, молекули антитіл, присутніх у плазмі крові людини, складаються з чотирьох поліпептидних ланцюгів, утримуваних разом S—S-зв'язками цистину (рис. 15.18). Кожен із двох довгих ланцюгів містить по 446 амінокислотних залишків, а кожен із коротких — по 214 залишків. Повністю визначено первинну структуру молекули деяких антитіл, тобто природу й послідовність усіх 660 або 1320 (на думку редакції сайту) залишків у ланцюгах. Послідовності перших 108 амінокислотних залишків у кожному ланцюзі різні в різних антитіл. Саме ці варіабельні ділянки молекули забезпечують здатність антитіл вибірково зв'язувати гомологічний антиген або гаптен. Конформацію поліпептидних ланцюгів у молекулі антитіла ще не встановлено.
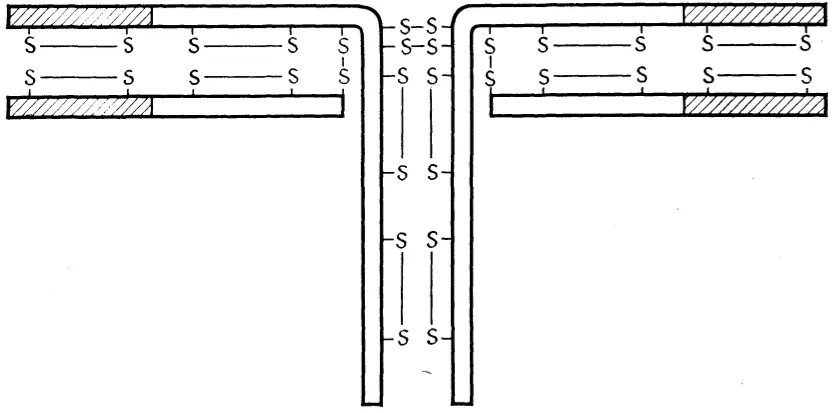
Рис. 15.18. Розташування чотирьох поліпептидних ланцюгів у молекулі антитіла людини. На рисунку штриховкою показано варіабельні ділянки.
Зв'язок антиген — антитіло
Зв'язок між активними (варіабельними) ділянками антитіла та гаптеном або гаптеновою групою антигена не є ковалентним зв'язком, а становить результат ряду слабких взаємодій — електронної ван-дер-ваальсової взаємодії, утворення водневих зв'язків, притягання між групами, що несуть різний електричний заряд. Ці типи слабких взаємодій у сукупності забезпечують досить сильне притягання, здатне протистояти розриву, який спричиняється тепловим рухом. Зі збільшенням відстані між взаємодіючими групами сили, що забезпечують зв'язування, швидко слабшають. Тому для ефективної взаємодії зв'язувальна ділянка антитіла повинна бути строго комплементарною за формою, розміром і положенням відповідним групам гаптена (на рис. 15.19 показано комплементарність гаптена — іона n-азосукцинанілату — й антитіла).
Необхідний ступінь цієї відповідності було визначено вимірюванням константи рівноваги зв'язування різних гаптенів з антитілами. Це можна здійснити, визначаючи концентрацію гаптена, потрібну для того, щоб пригнітити осадження 50% антитіла дигаптеновою сполукою або азобілком. Антитіло, що зв'язує, наприклад, іон n-азобензоату, має величину константи зв'язування з іоном о-хлорбензоату, що дорівнює лише одній п'ятій величини константи зв'язування з іоном бензоату. Оскільки атом Хлору (його ван-дер-ваальсів радіус дорівнює 181 пм) більший, ніж атом Гідрогену (ван-дер-ваальсів радіус дорівнює 110 пм або 120 пм (на думку редакції сайту)), хлорзаміщений гаптен насилу може вміститися в просторі, який займає атом Гідрогену гаптенової групи азобілка, що спричиняє в організмі кролика утворення певного типу антитіл. З іншого боку, іон n-хлорбензоату зв'язується з антитілом у 3,5 раза сильніше, ніж бензоат-іон. У цьому випадку простір, який займає азогрупа стимулювального гаптена, достатній для атома Хлору, а його більша (ніж в атома Гідрогену) електрична поляризовність веде до більшого ван-дер-ваальсового притягання сусідніх груп у зв'язувальних ділянках антитіла.
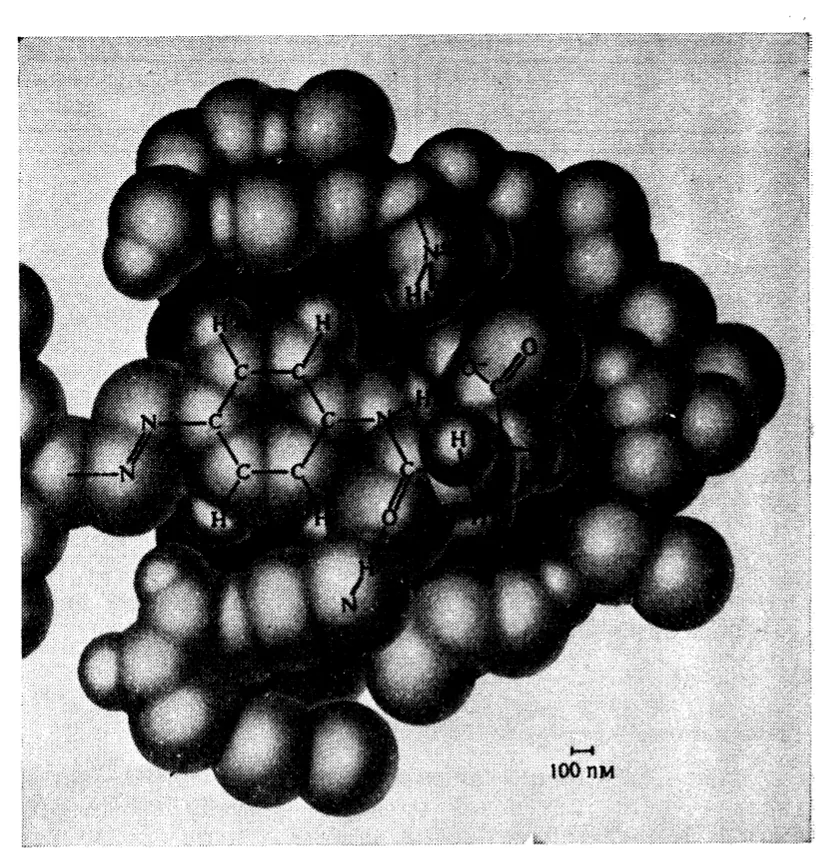
Рис. 15.19. Іон n-азосукцинанілату та зв'язувальна ділянка гомологічного антитіла. На рисунку показано високу комплементарність їхніх структур.
За наявними даними, у випадку сукцинанілату утворюється водневий зв'язок між CO-групою й антитілом. Константа зв'язування іона сукцинанілату знижується до 0,01 первісної величини, якщо CO-групу замінити CH2-групою. Є спостереження, які свідчать про те, що антитіло несе позитивний заряд, близький за величиною до негативного заряду гаптенової групи.
Кількісними дослідженнями зі зв'язування сотень гаптенових груп відомої будови з антитілами переконливо доведено, що вражаюча специфічність антитіл зумовлена наявністю в кожного антитіла ділянки, структура якої строго комплементарна відповідній структурі антигена, що викликав утворення цього антитіла. Ділянка зв'язування в антитілі відповідає розміру всього гаптена. Точність цієї відповідності становить приблизно 100 пм, тобто допуск менший, ніж діаметр атома. У молекулі антитіла електричні заряди та групи, що утворюють водневі зв'язки, комплементарні зарядам і групам гаптена й локалізовані таким чином, що забезпечується максимальне притягання. Зв'язувальна ділянка антитіла має жорстку конформацію, яка не підганяється до структури гаптена.
Цілком імовірно, що явище біологічної специфічності взагалі є результатом повної й тонкої комплементарності між структурами молекул, що взаємодіють. Структури ферментів комплементарні напруженим конфігураціям реагуючих молекул. Гени являють собою комплементарні ланцюги нуклеїнових кислот (підрозд. 15.6).
Комплементарність під час кристалізації
У неживій природі існує явище, аналогічне біологічній специфічності. Це — кристалізація. Кристал, що росте, може «витягувати» з багатокомпонентного розчину чи розплаву одні молекули й «відкидати» всі інші. Прикладом можуть слугувати кристали калій гідрогентартрату, які іноді утворюються в банках зі згущеним виноградним соком. Незважаючи на те що сік містить сотні різних видів молекул та іонів, аналіз промитих кристалів показує високий ступінь їхньої чистоти (99,99%).
Специфічність процесу кристалізації пояснюється комплементарністю структур кожної молекули (або іона), що бере участь у побудові кристала, і поверхонь, що ростуть. Можна уявити собі, що один тартрат-іон вилучено з кристала. Порожнина, що утворилася, матиме саме такі розміри й форму, які необхідні, щоб тартрат-іон міг заповнити її. Крім того, у кристалі є позитивно заряджені іони, розташовані поруч із місцями, де локалізуються негативні заряди тартрат-іона, а також комплементарні групи, що утворюють водневі зв'язки.
Одні й ті самі «помилки», що перешкоджають досягненню повної специфічності, знайдено і в серологічних комплексах, і в кристалах. Так, і антитіло до іона n-азо-м-бромбензоату, і антитіло до іона n-азо-м-метилбензоату зв'язують обидва гаптени майже однаково добре: вони не здатні чітко розрізнити метильну групу й атом Брому, які майже ідентичні за розміром і формою. З цієї самої причини кристали, що утворюються в суміші розчинів м-бромбензойної та м-метилбензойної кислот, не будуть чистими кристалами тієї чи іншої з цих речовин: вони становитимуть тверді розчини, що містять обидва види молекул у відношенні, яке визначається їхніми концентраціями в рідкій фазі.
Процес утворення антитіл
Старе уявлення (1940 р.) про структуру та процес утворення антитіл виходило з припущення, що молекула антитіла, яка спричиняє преципітацію або аглютинацію, складається із центральної частини зі строго визначеною структурою та двох кінцевих ділянок. Кінцеві ділянки являють собою поліпептидні ланцюги, які можуть складатися в конформації, комплементарні за структурою гаптеновим групам антигена, тобто утворюють дві зв'язувальні ділянки в молекулі антитіла. Це припущення узгоджується з отриманими пізніше даними про будову молекул антитіл (рис. 15.18). Крім того, передбачалося, що склад амінокислот у кінцевих поліпептидних ланцюгах дає змогу їм складатися багатьма різними способами, причому у всіх випадках потрібна приблизно та сама енергія. За наявності антигена ці ланцюги складатимуться в структуру, яка комплементарна відповідній структурі гаптенової групи антигена й стабілізується енергією взаємодії з цією групою. Потім комплекс антиген-антитіло дисоціює, і антиген знову може правити за матрицю для наступної молекули антитіла.
Тепер цей процес уявляється інакше. Як було встановлено, кінці чотирьох поліпептидних ланцюгів (рис. 15.18) мають різні амінокислотні послідовності в антитіл, гомологічних різним антигенам. Ці послідовності, ймовірно, такі, що змушують антитіло набувати конформації, яка забезпечує комплементарність його гаптеновій групі. Під дією антигена формується клон клітин, причому кожна клітина виробляє антитіла, комплементарні лише стимулювальному антигену.
Спостережувана специфічність антитіл до тисяч різних антигенів показує, що клітини, які утворюють антитіла, «підготовлені» до того, щоб під дією відповідного стимулу розмножуватися й виробляти той чи інший із тисяч можливих поліпептидних ланцюгів. Синтез цих ланцюгів регулюється генами. Стимулом, що запускає вироблення певного антитіла до антигена, є, мабуть, зв'язування антигена з комплементарним йому антитілом у такій клітині; проте докладний механізм цього процесу ще не розкрито.