
Лайнус Полінг, Пітер Полінг — Хімія
З повним правом можна стверджувати, що білки — найважливіші з усіх речовин, які входять до складу тварин і рослин. У клітинах білки можуть або перебувати у вигляді окремих молекул, що зазвичай характеризуються дуже великою молекулярною масою (приблизно від десяти тисяч до кількох мільйонів), або входити до складу сітчастих структур, які утворюють основу клітин. В організмі людини міститься тисячі різноманітних білків, що мають різну будову, внаслідок чого вони здатні виконувати специфічні функції.
Усі білки — нітрогеновмісні речовини, до складу яких входить приблизно 16% Нітрогену, а також Карбон, Гідроген, Оксиген і часто інші елементи, такі, як Сульфур, Фосфор, Ферум (молекула гемоглобіну, наприклад, містить чотири атоми Феруму) і Купрум.
Структуроутворювальні білки тіла людини називають фібрилярними білками (або волокнистими, вони мають витягнуту, ниткоподібну форму). Найважливіші фібрилярні білки тварин — це кератин і колаген; білок кератин входить до складу волосся, нігтів, м'язів, рогів, голок і пір'я; колаген — структурний компонент сухожилків, шкіри, кісток, сполучної тканини. Під час кип'ятіння колаген гідролізується й утворює розчинний у воді білок, що називається желатиною. У тілі людини є розчинні білки, які називають глобулярними білками. Альбуміни, такі, як сироватковий альбумін, що його добувають із крові тварин, овальбумін яєчного білка, лактальбумін молока, розчиняються в холодній воді та слабкому розчині солі. Глобуліни, наприклад глобуліни плазми крові, фібриноген, глобулін яєчного білка, глобулін молока, розчиняються в розведених розчинах солей, але не в холодній воді.
Амінокислоти
Під час нагрівання в кислих або лужних розчинах білки зазнають гідролізу з утворенням речовин, що називаються амінокислотами. Амінокислоти — це карбонові кислоти, в яких один атом Гідрогену заміщений аміногрупою —NH2. Амінокислоти, які добувають із білків, мають альфа-аміногрупу, приєднану до атома Карбону, зв'язаного з карбоксильною групою; їх називають α-амінокислотами (бо такий атом Карбону називається α-атомом Карбону). Найпростішою з цих амінокислот є α-амінооцтова кислота— гліцин CH2(NH2)COOH. Інші природні амінокислоти, у молекулах яких один з атомів Гідрогену біля α-атома Карбону заміщений на ту чи ту групу, що її зазвичай позначають R, мають загальну формулу CHR(NH2)COOH.
Аміногрупа має явно виражений основний характер, а карбоксильна група — кислотний, тому у водному розчині протон карбоксильної групи переходить до аміногрупи. У результаті карбоксильна група перетворюється на карбоксилат-іон, а аміногрупа — на заміщений іон амонію. Відповідно до цього будову гліцину та інших амінокислот у водному розчині можна подати так:
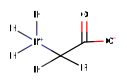
Аміно- і карбоксильні групи більшості амінокислот, розчинених у рідинах організму тварин або рослин (а ці рідини зазвичай мають pH ~7), внутрішньо іонізовані так, що групи амонійного та карбоксилатного іонів утворюються в одній і тій самій молекулі.
Встановлено, що важливими складовими білків є двадцять три амінокислоти. Назви цих кислот наведено в табл. 14.1; там само вказано формули характеристичних груп R. Деякі амінокислоти мають додаткову карбоксильну групу або додаткову аміногрупу. Так, є двоосновна діамінокислота — цистин, дуже близька до простої амінокислоти цистеїну. Чотири з указаних у таблиці амінокислот містять гетероциклічні кільця (кільця, що складаються з атомів Карбону та одного чи кількох атомів інших елементів, у цьому разі атомів Нітрогену). Дві з наведених амінокислот — аспарагін і глутамін — споріднені з двома іншими — аспарагіновою і глутаміновою кислотами, від яких аспарагін і глутамін відрізняються лише тим, що замість додаткової карбоксильної групи мають амідну групу

Білки — важлива складова частина їжі. Вони перетравлюються під дією травних соків у шлунково-кишковому тракті, розщеплюючись у процесі травлення на невеликі молекули, головним чином, мабуть, на молекули амінокислот. Такі невеликі молекули здатні проникати крізь стінки шлунка й кишківника в кров; потік крові переносить їх до різних тканин організму, де вони править за вихідні речовини для синтезу специфічних білків, потрібних даному організмові. У деяких випадках хворим, організм яких незадовільно засвоює їжу, вводять безпосередньо в кров поживні речовини у вигляді розчину амінокислот. Потрібний для цього розчин амінокислот зазвичай добувають гідролізом білків.
Праві та ліві форми молекул амінокислот
У підрозд. 6.4 уже вказувалося, що деякі речовини існують у двох ізомерних (енантіомерних) формах, які називаються L-(лівою) і D-(правою) формами, молекули яких співвідносяться як предмети та їх дзеркальні відображення. По дві таких форми є в усіх амінокислот (виняток становить гліцин); вони відрізняються просторовим розташуванням чотирьох груп, зв'язаних з α-атомом Карбону. На рис. 14.1 наведено два енантіомери амінокислоти аланіну, в якій R — метильна група CH3.
Надзвичайно разючим є той факт, що лише один з двох можливих енантіомерів кожної амінокислоти виявлено в тваринних і рослинних білках і що кожен такий енантіомер має однакову конфігурацію для всіх амінокислот; іншими словами, в усіх випадках атом Гідрогену, карбоксильна група й аміногрупа займають однакове просторове положення відносно групи R біля α-атома Карбону. Така конфігурація називається L-конфігурацією — усі природні білки побудовано з L-амінокислот.
ТАБЛИЦЯ 14.1.
Це вельми загадковий факт, і поки що не відомо, чому живі організми побудовано з L-, а не D-молекул амінокислот. Усі вивчені білки, добуті з тваринних і рослинних організмів, як з вищих, так і з найпростіших — бактерій, пліснявих грибів і навіть вірусів, складаються, як встановлено, з L-амінокислот*. Праві й ліві форми молекул мають цілком однакові властивості, оскільки це стосується їхньої взаємодії зі звичайними речовинами, але вони відрізняються тоді, коли взаємодіють з правими та лівими формами інших молекул. На Землі могли б жити організми, побудовані з D-амінокислот, так само як і організми, побудовані з L-амінокислот. Якби людина раптово перетворилася на своє дзеркальне відображення, то вона не помітила б спочатку жодних змін навколо себе, за винятком того, що писала б не правою, а лівою рукою, зачісувала б волосся на правий, а не на лівий бік, за биттям серця відчувала б, що воно міститься в правій частині грудної клітки тощо; вона могла б пити воду, дихати повітрям і використовувати кисень, що в ньому міститься, для процесів окиснення, видихати карбон(IV) оксид — увесь її організм функціонував би нормально доти, доки їй не знадобилася б їжа. А коли б вона почала їсти звичайну їжу рослинного чи тваринного походження, то виявила б, що не може її перетравлювати**. Вона могла б підтримувати життя, лише споживаючи їжу, що містить синтетичні D-амінокислоти, які добувають у хімічних лабораторіях. Вона не могла б мати дітей, якби не знайшла дружини, яка зазнала б точно такого самого процесу перетворення на своє дзеркальне відображення. Земля могла б бути заселена двома цілком незалежними видами живих організмів — рослинами, тваринами, людськими істотами двох видів, які не могли б користуватися їжею, що її споживають істоти протилежного виду, не могли б давати гібридного потомства.
Рис. 14.1. Два енантіомери амінокислоти аланіну.
Ніхто ще не знає, чому живі організми побудовано з L-амінокислот. Поки що немає переконливих доказів того, що молекули, подібні до білків, не могли б бути побудовані з рівного числа правих і лівих молекул амінокислот. Можливо, білкові молекули, побудовані з молекул амінокислот лише одного виду, особливо підходять для побудови живих організмів, але якщо це так, то невідомо, чому це саме так3*.
Наука не знає також, чому живі організми обрали L-, а не D-систему. Висловлювалося припущення, що перший живий організм випадково скористався кількома молекулами, які мають L-конфігурацію і які були присутні разом з такою самою кількістю D-молекул; потім усі наступні форми життя в процесі його розвитку й далі користувалися молекулами L-амінокислот, одержаними у спадок від первісної форми життя. Можливо, буде знайдено краще пояснення, але яким воно буде, автори книги не знають.
Незамінні амінокислоти
Хоча до складу білків людського організму й входять усі амінокислоти, перелічені в табл. 14.1, проте зовсім не всі вони мусять обов'язково міститися в їжі. Експериментально доведено, що для людини істотне значення має дев'ять амінокислот. Такими незамінними амінокислотами є: гістидин, ізолейцин, лейцин, лізин, метіонін, фенілаланін, треонін, триптофан і валін. Усі решта амінокислот, які називають замінними амінокислотами, людський організм здатний виробляти сам. Мінімальні кількості амінокислот, потрібні людині в молодому віці, було встановлено американським біохіміком В. Ч. Роузом. Якщо щодобове надходження до організму людини будь-якої з восьми зазначених амінокислот (за винятком гістидину) виявиться нижчим за певний рівень, то організм людини виділятиме більше сполук Нітрогену, ніж одержуватиме їх з їжею: білки в його організмі розпадатимуться швидше, ніж синтезуватимуться. Потреба молодих людей в амінокислотах коливається в межах дворазової дози, наприклад 0,4—0,8 г лізину на добу. Мінімальна потреба за Роузом є найбільшою величиною для будь-якої з осіб, за якими він спостерігав. Немає сумнівів, що кожна людина відрізняється від іншої своїми генетичними особливостями, а отже, і своїми біохімічними характеристиками. Дані, наведені в табл. 14.2, удвічі перевищують значення, встановлені Роузом. Імовірно, ці кількості цілком достатні для запобігання порушенням білкового обміну в більшості людей (99%). Потреби жінок становлять приблизно дві третини від кількостей, зазначених для чоловіків.
Дев'ята амінокислота з перелічених вище — гістидин — мабуть, не потрібна дорослим людям, але необхідна для нормального росту дітей (добова доза 30 мг на 1 кг ваги дитини).
Білкові харчові продукти, які споживає людина, можна поділити на повноцінні, що містять усі незамінні амінокислоти, і неповноцінні, в яких відсутня одна або кілька незамінних амінокислот. З цього погляду казеїн — основний білок молока— є повноцінним білком, тоді як желатина — білок, що його добувають з кісток і сухожилків (під час часткового гідролізу нерозчинного білка колагену утворюється желатина), — неповноцінний білок. Желатина не містить триптофану, валіну й дуже мало містить або зовсім не містить треоніну.
ТАБЛИЦЯ 14.2.
ТАБЛИЦЯ 14.3.
Вміст незамінних амінокислот у восьми типових харчових продуктах наведено в табл. 14.3. З таблиці видно, що продукти рослинного походження містять менші кількості незамінних амінокислот (25—30 г на 100 г білка), ніж м'ясна їжа (36— 42%). Порівняння з табл. 14.2 показує, що 100 г змішаних білків на добу забезпечують подвійну норму споживання всіх незамінних амінокислот, крім метіоніну. Нестача метіоніну частково компенсується споживанням цистину, вміст якого в тваринних білках становить 2 г на 100 г, тоді як у білках рослинного походження його міститься 1 г на 100 г. Мабуть, для підтримання здоров'я досить щодня приймати з їжею 1 г білка (або дещо меншу кількість, якщо йдеться про високоякісний білок) на 1 кг власної ваги, проте для оптимального стану здоров'я цю дозу бажано збільшити.
Деякі організми, що їх зазвичай уважають порівняно з людиною простішими, мають більші можливості, оскільки виробляють усі перелічені амінокислоти з неорганічних вихідних речовин. Такою здатністю має, наприклад, червона хлібна пліснява Neurospora. У процесі еволюції той чи той організм втрачає здатність виробляти (за допомогою ферментів) такі життєво важливі речовини й змушений одержувати їх лише з їжею. Водночас деякі хребетні, наприклад собаки та щури, потребують, крім тих незамінних амінокислот, що потрібні людині, ще однієї амінокислоти — аргініну.
Первинна структура білків
Упродовж останніх ста років учені доклали багато зусиль, намагаючись установити будову білка. Це надзвичайно важлива проблема, і в її розробленні досягнуто значних успіхів. Тепер учені значно краще, ніж раніше, розуміють природу фізіологічних процесів, а нові відомості про будову білкових молекул подають неоціненну допомогу під час розроблення важливих проблем медицини, таких, як лікування серцевих захворювань або раку.
Рис. 14.2. Утворення дипептиду гліцилгліцину шляхом конденсації двох молекул гліцину. Структурна формула фрагмента поліпептидного ланцюга.
У період 1900—1910 рр. німецькому хімікові Емілю Фішеру (1852— 1919) вдалося одержати переконливі дані, які свідчать про те, що амінокислоти в білках з'єднані в довгі ланцюги, які називаються поліпептидними ланцюгами. Так, дві молекули гліцину можуть сполучатися й утворювати подвійну молекулу гліцилгліцину, наведену на рис. 14.2; під час утворення такої молекули виділяється вода. Зв'язок, що виник, називається пептидним зв'язком. Процес утворення такого роду зв'язків може тривати й далі, внаслідок чого створюватиметься довгий ланцюг, що містить безліч амінокислотних залишків (рис. 14.2).
Рис. 14.3. Хроматографічна колонка. Вертикальна скляна трубка, заповнена дрібними частинками речовини, які сорбують на своїй поверхні розчинені молекули. Різні молекули (наприклад, амінокислот) сорбуються з розчину міцніше й менш міцно. Розчин, що містить різні речовини, вводять у верхню частину колонки, після чого додають розчинник. Під час повільного проходження рідини крізь колонку речовини, що по-різному адсорбуються, переміщуються вниз з різними швидкостями. Якщо вони забарвлені, то їх можна спостерігати у вигляді окремих смуг — забарвлених зон (звідси й назва «хроматографія»). Фракції розчинника, що містять різні розчинені речовини, можна відбирати з нижньої частини колонки. Важливими методами є також хроматографія на папері та газорідинна хроматографія.
Для визначення числа поліпептидних ланцюгів у білковій молекулі розроблено спеціальні хімічні методи. Ці методи ґрунтуються на використанні особливого реагенту (динітрофлуоробензену), який сполучається з вільною аміногрупою амінокислотного залишку на кінці поліпептидного ланцюга з утворенням забарвленого комплексу; такий комплекс можна виділити й ідентифікувати після того, як білок зазнає гідролізу й розпадеться на амінокислоти, що його складають, включно з кінцевою амінокислотою з приєднаною до неї забарвленою групою. Потім амінокислоти відокремлюють одну від одної хроматографічним методом (рис, 14.3) та ідентифікують кінцеву амінокислоту з приєднаною до неї забарвленою групою. Білок можна частково гідролізувати до пептидів, у кожному з яких міститиметься кілька амінокислотних залишків. Ці пептиди потім виділяють хроматографічним методом і визначають послідовність розташування в них амінокислот. Так, вивчаючи будову інсуліну, англійський біохімік Фред Сенгер (нар. 1918) одержав низку пептидів, серед яких були й такі дипептиди:
Ile-Val
Val-Glu
Glu-Glu
Glu-Cys
Ці дипептиди перекриваються, і їхнє взаємне накладання виявляє послідовність Ile-Val-Glu-Glu-Cys. Він одержав також тетрапептид з міченим залишком Gly (аміноконець ланцюга) та з амінокислотними залишками Ile, Val і Glu, послідовність яких була невідома. Він дійшов висновку, що інсулін містить ланцюг, який починається з послідовності Gly-Ile-Val-Glu-Glu-Cys.
Порядок чергування амінокислотних залишків у поліпептидних ланцюгах (що його називають первинною структурою) уперше саме таким чином було встановлено для білка інсуліну. Молекула інсуліну має молекулярну масу 5733. Вона складається з двох поліпептидних ланцюгів, один з яких містить 21 амінокислотний залишок, другий 30. Послідовності амінокислот у короткому й довгому ланцюгах було визначено в період 1945—1952 рр. Сенгером і його співробітниками. Обидва ланцюги в молекулі інсуліну з'єднані дисульфідними зв'язками S—S, утвореними між залишками цистину.
Послідовність амінокислот у молекулі інсуліну людини показано на рис. 14.4. Слід звернути увагу, що символ Су—S використано для позначення половини молекули цистину. Місток S—S розташований між шостим і одинадцятим залишком у ланцюгу А, завдяки чому утворюється кільце; є також два зв'язки S—S, що з'єднують ланцюг А з ланцюгом Б.
Інсулін тварин має дещо іншу первинну структуру, що відрізняється від структури інсуліну людини. Інсулін, який вводять шляхом ін'єкцій під час захворювання людини на діабет, — це інсулін свині та великої рогатої худоби. Ланцюг A інсуліну свині ідентичний ланцюгу А інсуліну людини, а ланцюг Б відрізняється лише одним амінокислотним залишком (у положенні 30 є Ala замість Thr). Інсулін великої рогатої худоби має той самий ланцюг Б, що й інсулін свині, але ланцюг А відрізняється від ланцюга А інсуліну людини тим, що має в положенні 8—10 амінокислотні залишки Ala-Ser-Val замість Thr-Ser-Ile. Інсулін слона має такий самий ланцюг Б, як і інсулін людини, але ланцюг А відрізняється тим, що в положеннях 9 і 10 замість Ser-Ile перебувають Gly-Val. Інсулін собаки ідентичний інсуліну свині та відрізняється від інсуліну людини лише останньою ланкою в ланцюгу Б.
Інсулін — це гормон. Фізіологічну дію гормонів розглянуто в підрозд. 14.10.
Рис. 14.4. Первинна структура інсуліну людини.
Денатурація білків
Такі білки, як інсулін і гемоглобін, мають низку специфічних властивостей, завдяки яким набувають особливо важливого значення для організму. Інсулін — гормон, що сприяє процесові окиснення цукру в організмі тварини. Гемоглобін оборотно зв'язує кисень, приєднуючи його в легенях і віддаючи в тканинах. Ці точно встановлені функції наочно показують, що молекули білка повинні мати специфічну будову.
Білок, який зберігає свої характерні специфічні властивості, називається нативним білком: гемоглобін у тому вигляді, в якому він перебуває в еритроцитах або в ретельно приготовленому розчині гемоглобіну, в якому він усе ще продовжує зберігати свою властивість оборотно сполучатися з киснем, називається нативним гемоглобіном. Багато білків дуже легко втрачають притаманні їм специфічні властивості. Тоді кажуть, що вони денатуровані. Гемоглобін можна денатурувати просто нагріванням його розчину до 65 °C. У результаті такого нагрівання він коагулює, утворюючи нерозчинний коагулят цегляно-червоного кольору. Більшість інших білків також денатурується під час нагрівання приблизно до такої самої температури. Яєчний білок, наприклад, являє собою розчин, що складається головним чином з білка овальбуміну з молекулярною масою 43 000. Овальбумін — розчинний білок. Під час нагрівання його розчину приблизно до 65 °C і витримування протягом деякого часу за цієї температури овальбумін денатурується, даючи нерозчинний білий коагулят. Це явище спостерігається під час варіння яєць.
Прийнято вважати, що процес денатурації супроводжується розкручуванням поліпептидних ланцюгів, зміною структури, характерної для природного білка. У коагуляті денатурованого гемоглобіну або денатурованого овальбуміну розкручені поліпептидні ланцюги різних молекул даного білка настільки переплетені між собою, що їх уже не можна розділити, чим і пояснюється нерозчинність денатурованого білка. Деякі хімічні реагенти, до яких належать сильні кислоти, сильні луги та спирти, править за сильні денатурувальні засоби.
* Залишки D-амінокислот виявлено в небагатьох простих пептидах, що містяться в живих організмах.
** Аліса: «Може бути, дзеркальне молоко не годиться для пиття». З книги «У Задзеркаллі» Льюїса Керролла (Чарлз Латвідж Доджсон), 1872.
3* Одна з причин може полягати в тому, що в разі суміші L- і D -залишків в α-спіралі будуть дуже сильно переущільнені бічні ланцюги (розд. 15).