Лайнус Полінг, Пітер Полінг — Хімія
Человек, заразившийся оспой, может умереть в результате нарушений, которые вызывает вирус оспы, размножающийся в клетках организма. Если организм выживает, он приобретает против оспы иммунитет, который сохраняется до конца жизни, однако не защищает его от других вирусных заболеваний. Иммунитет обеспечивается специфическими белковыми молекулами — антителами, которые вырабатываются в организме в ответ на инъекцию определенных молекул. Молекулы (в случае оспы — вирусные частицы), стимулирующие образование антител в организме, называются антигенами.
У человека антителами являются гамма-глобулины — белки, содержащиеся в сыворотке крови. Их молекулярная масса составляет примерно 150 000. Антигенами для человека или животного могут служить чужеродные белки и полисахариды при их попадании в организм. Небольшие молекулы могут быть присоединены к белкам и введены в организм, чтобы вызвать образование антител, способных специфически связываться с ними. Так, если n-аминобензойную кислоту H2NC6H4COOH обработать соляной кислотой и нитратом натрия или нитритом натрия (по мнению редакции сайта), образуется ион диазония :N≡+N—C6H4COOH, который может реагировать с некоторыми боковыми группами полипептидной цепи белка. Получающиеся таким образом азобелки несут группу азобензоата —NNC6H4COO−. Антитела, вырабатываемые в ответ на инъекцию такого азобелка в организм животного, могут обладать меньшей способностью к связыванию исходного белка и большей — к соединению со связанным с белком азобензоатом (группа азобензоата называется гаптеновой группой или гаптеном, от греческого слова haptein — охватывать, хвататься за что-либо). Антисыворотка (сыворотка крови иммунизированного азобелком животного) вызывает образование осадка с любым белком, к которому присоединены группы азобензоата, и агглютинацию (слипание) клеток, несущих эти группы. Антисыворотка не образует осадка со свободным ионом бензоата. Напротив, ион бензоата в достаточно высоких концентрациях препятствует осаждению гомологичного* азобелка и агглютинации «азоклеток» антисывороткой.
Эти факты можно объяснить, если допустить, что в молекуле антитела имеются два или несколько участков для связывания антигена. На поверхности молекулы азобелка имеется несколько гаптеновых групп, благодаря чему молекулы антитела связывают молекулы азобелка в сетчатый агрегат, который и составляет основу иммунного преципитата (рис. 15.17). Связанная только с гаптеном молекула антитела остается в растворе, и реакции преципитации не происходит, даже если гаптены соприкасаются с участками связывания на антителе. Однако было показано, что такое вещество, как диазобензоат-о-крезол
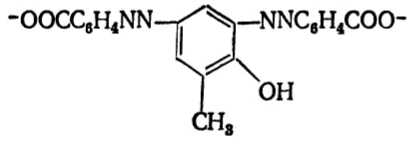
содержащее две гаптеновые группы в молекуле, образует преципитат с антисывороткой к азобензоату. Кроме того, оказалось, что преципитат содержит равное число молекул этого дигаптенового вещества и антитела, и, следовательно, молекулы вызывающего преципитацию и агглютинацию антитела имеют два связывающих участка.
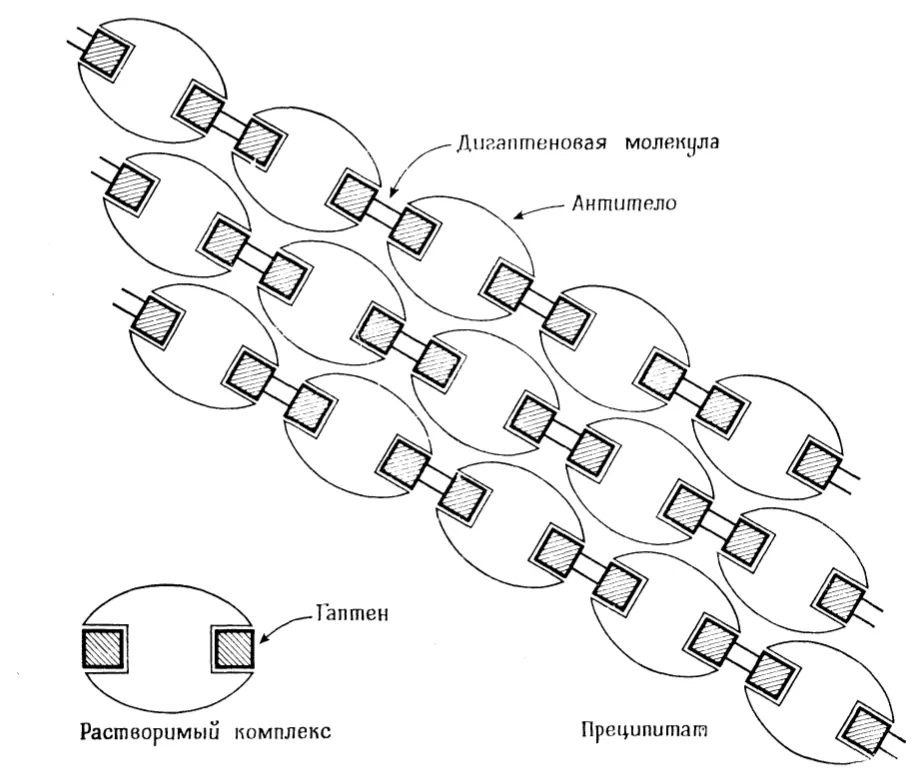
Рис. 15.17. Схематическое изображение растворимого комплекса «двухвалентного» антитела с двумя гаптенами и структуры преципитата, образованного антителом и дигаптеновым веществом.
* Гомологичными называют белки, выполняющие у разных организмов одни и те же функции. — Прим. перев.
Структура антител
Как было установлено, главным образом работами Р. Портера в Англии и Г. Эдельмана в США, молекулы антител, присутствующих в плазме крови человека, состоят из четырех полипептидных цепей, удерживаемых вместе S—S-связями цистина (рис. 15.18). Каждая из двух длинных цепей содержит по 446 аминокислотных остатков, а каждая из коротких — по 214 остатков. Полностью определена первичная структура молекулы некоторых антител, т. е. природа и последовательность всех 660 или 1320 (по мнению редакции сайта) остатков в цепях. Последовательности первых 108 аминокислотных остатков в каждой цепи различны у разных антител. Именно эти вариабельные участки молекулы обеспечивают способность антителам избирательно связывать гомологичный антиген или гаптен. Конформация полипептидных цепей в молекуле антитела еще не установлена.
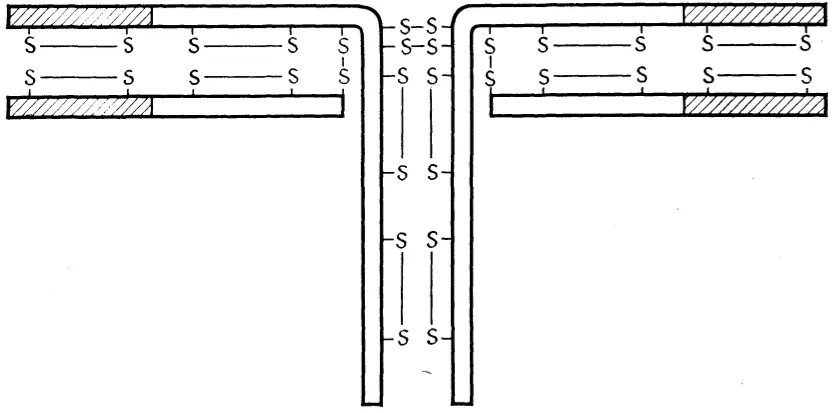
Рис. 15.18. Расположение четырех полипептидных цепей в молекуле антитела человека. На рисунке штриховкой показаны вариабельные участки.
Связь антиген — антитело
Связь между активными (вариабельными) участками антитела и гаптеном или гаптеновой группой антигена не является ковалентной связью, а представляет собой результат ряда слабых взаимодействий — электронного вандерваальсова взаимодействия, образования водородных связей, притяжения между группами, несущими различный электрический заряд. Эти типы слабых взаимодействий в совокупности обеспечивают достаточно сильное притяжение, способное противостоять разрыву, вызываемому тепловым движением. С увеличением расстояния между взаимодействующими группами силы, обеспечивающие связывание, быстро ослабевают. Поэтому для эффективного взаимодействия связывающий участок антитела должен быть строго комплементарен по форме, размеру и положению соответствующим группам гаптена (на рис. 15.19 показана комплементарность гаптена — иона n-азосукцинанилата — и антитела).
Необходимая степень этого соответствия была определена измерением константы равновесия связывания различных гаптенов с антителами. Это можно осуществить, определяя концентрацию гаптена, необходимую для того, чтобы подавить осаждение 50% антитела дигаптеновым соединением или азобелком. Антитело, связывающее, например, ион n-азобензоата, имеет величину константы связывания с ионом о-хлорбензоата, равную только одной пятой величины константы связывания с ионом бензоата. Так как атом хлора (его вандерваальсов радиус равен 181 пм) больше, чем атом водорода (вандерваальсов радиус равен 110 пм или 120 пм (по мнению редакции сайта)), хлорзамещенный гаптен с трудом может поместиться в пространстве, занимаемом атомом водорода гаптеновой группы азобелка, который вызывает в организме кролика образование определенного типа антител. С другой стороны, ион n-хлорбензоата связывается с антителом в 3,5 раза сильнее, чем бензоат-ион. В этом случае пространство, занимаемое азо-группой стимулирующего гаптена, достаточно для атома хлора, а его большая (чем атома водорода) электрическая поляризуемость ведет к большему вандерваальсову притяжению соседних групп в связывающих участках антитела.
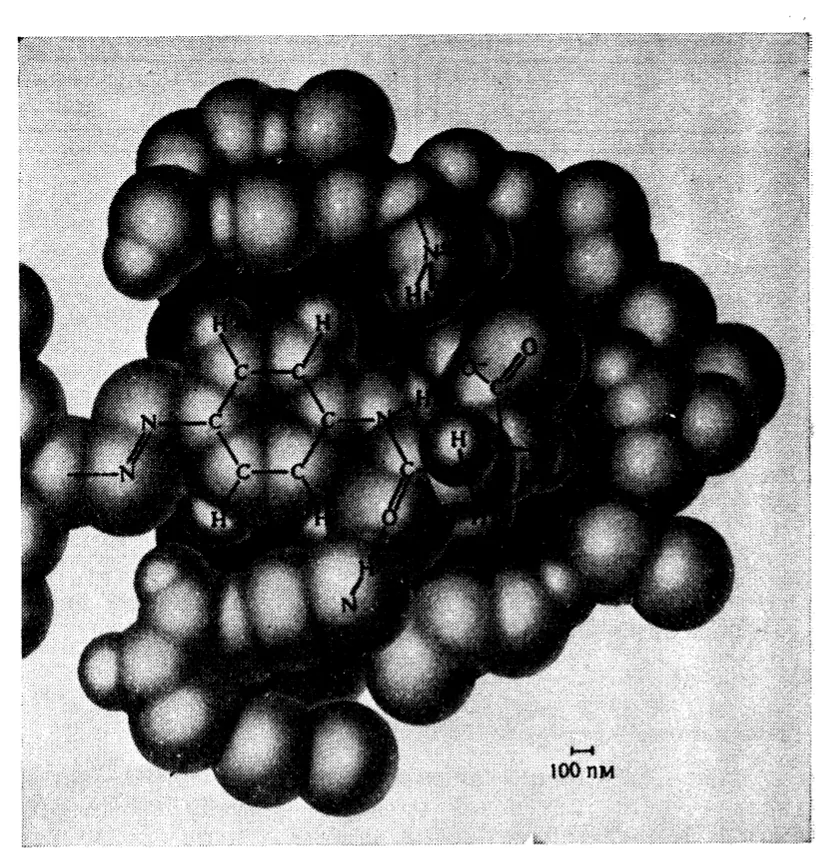
Рис. 15.19. Ион n-азосукцинанилата и связывающий участок гомологичного антитела. На рисунке показана высокая комплементарность их структур.
По имеющимся данным, в случае сукцинанилата образуется водородная связь между СО-группой и антителом. Константа связывания иона сукцинанилата понижается до 0,01 первоначальной величины, если СО-группу заместить CH2-группой. Есть наблюдения, свидетельствующие о том, что антитело несет положительный заряд, близкий по величине отрицательному заряду гаптеновой группы.
Количественными исследованиями по связыванию сотен гаптеновых групп известного строения с антителами убедительно доказано, что поразительная специфичность антител обусловлена наличием у каждого антитела участка, структура которого строго комплементарна соответствующей структуре антигена, вызвавшего образование данного антитела. Участок связывания в антителе соответствует размеру всего гаптена. Точность этого соответствия составляет примерно 100 пм, т. е. допуск меньше, чем диаметр атома. В молекуле антитела электрические заряды и образующие водородные связи группы комплементарны зарядам и группам гаптена и локализованы таким образом, что обеспечивается максимальное притяжение. Связывающий участок антитела имеет жесткую конформацию, которая не подгоняется к структуре гаптена.
Вполне вероятно, что явление биологической специфичности вообще есть результат полной и тонкой комплементарности между структурами взаимодействующих молекул. Структуры ферментов комплементарны напряженным конфигурациям реагирующих молекул. Гены представляют собой комплементарные цепи нуклеиновых кислот (разд. 15.6).
Комплементарность при кристаллизации
В неживой природе существует явление, аналогичное биологической специфичности. Это — кристаллизация. Растущий кристалл может «извлекать» из многокомпонентного раствора или расплава одни молекулы и «отвергать» все остальные. Примером могут служить кристаллы кислого тартрата калия, которые иногда образуются в банках со сгущенным виноградным соком. Несмотря на то что сок содержит сотни разных видов молекул и ионов, анализ промытых кристаллов показывает высокую степень их чистоты (99,99%).
Специфичность процесса кристаллизации объясняется комплементарностью структур каждой участвующей в построении кристалла молекулы (или иона) и растущими поверхностями. Можно представить себе, что один тартрат-ион удален из кристалла. Образовавшаяся полость будет иметь как раз такие размеры и форму, какие необходимы, чтобы тартрат-ион мог заполнить ее. Кроме того, в кристалле находятся положительно заряженные ионы, расположенные рядом с местами, где локализуются отрицательные заряды тартрат-иона, а также комплементарные группы, образующие водородные связи.
Одни и те же «ошибки», препятствующие достижению полной специфичности, найдены и в серологических комплексах, и в кристаллах. Так, и антитело к иону n-азо-м-бромбензоата, и антитело к иону n-азо-м-метилбензоата связывают оба гаптена почти одинаково хорошо: они не способны четко различить метильную группу и атом брома, которые почти идентичны по размеру и форме. По этой же причине кристаллы, которые образуются в смеси растворов м-бромбензойной и м-метилбензойной кислот, не будут чистыми кристаллами того или другого из этих веществ: они будут представлять собой твердые растворы, содержащие оба вида молекул в отношении, которое определяется концентрациями их в жидкой фазе.
Процесс образования антител
Старое представление (1940 г.) о структуре и процессе образования антител исходило из предположения, что вызывающая преципитацию или агглютинацию молекула антитела состоит из центральной части со строго определенной структурой и двух концевых участков. Концевые участки представляют собой полипептидные цепи, которые могут складываться в конформации, комплементарные по структуре гаптеновым группам антигена, т. е. образуют два связывающих участка в молекуле антитела. Это предположение согласуется с полученными позднее данными о строении молекул антител (рис. 15.18). Кроме того, предполагалось, что состав аминокислот в концевых полипептидных цепях позволяет им складываться многими разными способами, причем во всех случаях требуется примерно одна и та же энергия. В присутствии антигена эти цепи будут складываться в структуру, которая комплементарна соответствующей структуре гаптеновой группы антигена и стабилизируется энергией взаимодействия с этой группой. Затем комплекс антиген-антитело диссоциирует и антиген вновь может служить матрицей для следующей молекулы антитела.
Сейчас этот процесс представляется иначе. Как было установлено, концы четырех полипептидных цепей (рис. 15.18) имеют различные аминокислотные последовательности у антител, гомологичных разным антигенам. Эти последовательности, вероятно, таковы, что заставляют антитело принимать конформацию, обеспечивающую комплементарность его гаптеновой группе. Под действием антигена формируется клон клеток, причем каждая клетка вырабатывает антитела, комплементарные только стимулирующему антигену.
Наблюдаемая специфичность антител к тысячам разных антигенов показывает, что образующие антитела клетки «подготовлены» к тому, чтобы под действием соответствующего стимула размножаться и вырабатывать ту или иную из тысяч возможных полипептидных цепей. Синтез этих цепей регулируется генами. Стимулом, запускающим выработку определенного антитела к антигену, является, по-видимому, связывание антигена с комплементарным ему антителом в такой клетке; однако детальный механизм этого процесса еще не раскрыт.