Лайнус Полінг, Пітер Полінг — Хімія
Первое почти исчерпывающее определение структуры глобулярного белка было дано английским ученым Дж. Кендрю (родился в 1917 г.) и его многочисленными сотрудниками в период с 1946 по 1960 г. Они получили и расшифровали рентгенограммы кристаллического миоглобина кашалота. Миоглобин, присутствующий в скелетных мышцах, является белком, подобным гемоглобину, но в отличие от него молекула миоглобина состоит только из одной полипептидной цепи (около 150 аминокислотных остатков, молекулярная масса около 17 000) и содержит одну группу гема (разд. 13.7). Рентгеноструктурное исследование кристаллов гемоглобина, проведенное английским ученым Максом Перуцем (род. в 1914 г.) и его сотрудниками, показало, что молекула гемоглобина представляет собой агрегат из четырех субъединиц, каждая из которых по строению весьма близка миоглобину.
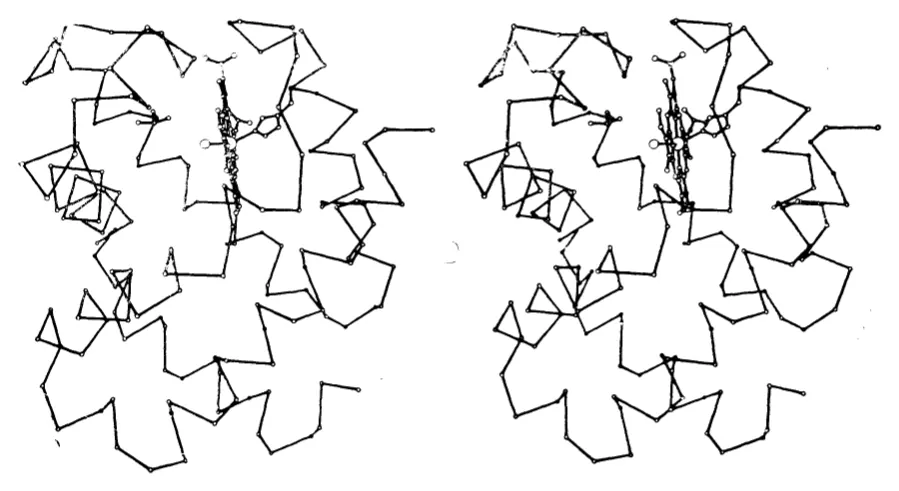
Рис. 15.11. Стереоскопическое изображение пространственной конфигурации молекулы гемоглобина кольчатого червя Glycera.
Кружки, соответствующие положению α-атомов углерода, связаны прямыми отрезками. Показано также положение гем-группы.
[From Padlan E. A., Love W. E., J. Biolog. Chem., 249, 4067 (1974).]
Вторичные структуры миоглобина и гемоглобина представлены главным образом α-спиралями. Восемь отрезков полипептидной цепи являются относительно прямолинейными α-спиралями; эти отрезки содержат 80% аминокислотных остатков всей цепи, остальные 20% остатков приходятся на места сгибов, соединяющие между собой α-спиральные отрезки. При укладывании цепи (третичная структура) образуется полость, в которой расположена гем-группа.
Приблизительное представление о такой структуре дает рис. 15.11, который воспроизводит пространственную модель молекулы гемоглобина, выделенного из кольчатого червя класса полихет (Glycera dibranchiata). Каждая пептидная группа CCONHC обозначена прямым отрезком, соединяющим два кружка, которые соответствуют положению в пространстве α-атомов углерода, принадлежащих 150 или 146 аминокислотным остаткам. На рисунке ясно видно несколько участков α-спирали. Атом железа, показанный более крупным кружком в центре почти плоской гем-группы, образует шесть связей: четыре с атомами азота гем-группы, одну с атомом азота имидазольного кольца боковой цепи гистидина (остаток № 90, считая от свободного NH2-конца полипептидной цепи) и одну с атомом кислорода, принадлежащего молекуле связываемого гемоглобином кислорода (кружок слева от плоскости гема), или с атомом углерода молекулы окиси углерода.
α- и β-Цепи гемоглобина
Методом, разработанным Сенгером (разд. 14.3), было обнаружено, что молекула гемоглобина млекопитающих содержит четыре полипептидные цепи, к каждой из которых присоединена гем-группа. У большинства млекопитающих гемоглобины имеют цепи двух типов (называемые α- и β-цепями), по две цепи каждого типа в молекуле. В нормальном гемоглобине взрослого человека α-цепи построены из 140 аминокислотных остатков, β-цепи — из 146. У других млекопитающих число аминокислотных остатков в цепях почти такое же. Последовательность аминокислотных остатков полностью известна для полипептидных цепей нормального гемоглобина человека, для многих аномальных гемоглобинов человека (см. разд. 15.8) и для гемоглобинов многих видов животных. Последовательность первых нескольких остатков в цепях нормального гемоглобина взрослого человека следующая:
| Положение | 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 | 9 | 10 | 11 | 12 | |
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| α-Цепь | H2N— | Val | Leu | Ser | Pro | Ala | Asp | Lys | Thr | Asn | Val | Lys | Ala |
| β-Цепь | H2N— | Val | His | Leu | Thr | Pro | Glu | Glu | Lys | Ser | Ala | Val | Thr |
Первичная структура обоих типов цепей довольно близка — примерно половину одних и тех же мест в цепях занимают одинаковые остатки (обратите внимание на выпадение гистидина между положениями 1 и 2 в α-цепи). Молекулы гемоглобинов некоторых беспозвоночных состоят из цепи только одного типа.
Равновесное взаимодействие гемоглобина с кислородом. Аллостерические структуры белков
Молекула гемоглобина человека, подобно гемоглобину других млекопитающих, состоит из четырех полипептидных цепей (каждая из которых содержит одну гем-группу) и способна обратимо присоединять четыре молекулы кислорода. Уже много лет назад было показано, что равновесное связывание кислорода гемоглобином описывается S-образной кривой, приведенной на рис. 15.12, которая отличается от аналогичной кривой для миоглобина. Для миоглобина, содержащего одну гем-группу в молекуле, следует ожидать кривую равновесия, отвечающую реакции
Mb + O2 ⇄ MbO2
Константа равновесия данной реакции
$$\frac{[\mathrm{MbO_2}]}{[\mathrm{Mb}]\,p_{\mathrm{O_2}}} = K$$
или
$$\text{Доля оксигенированных молекул Mb} = \frac{[\mathrm{MbO_2}]}{[\mathrm{Mb}]+[\mathrm{MbO_2}]} = \frac{K p_{\mathrm{O_2}}}{1 + K p_{\mathrm{O_2}}}.$$
Экспериментальные данные хорошо согласуются с этим уравнением.
Если четыре гем-группы молекулы гемоглобина связывают кислород независимо одна от другой, это уравнение должно быть справедливо и для гемоглобина. Однако наблюдаемая S-образная кривая показывает, что между гем-группами существует взаимодействие — связывание молекулы кислорода с одной гем-группой приводит к изменению других групп так, что их константа равновесного связывания кислорода возрастает.
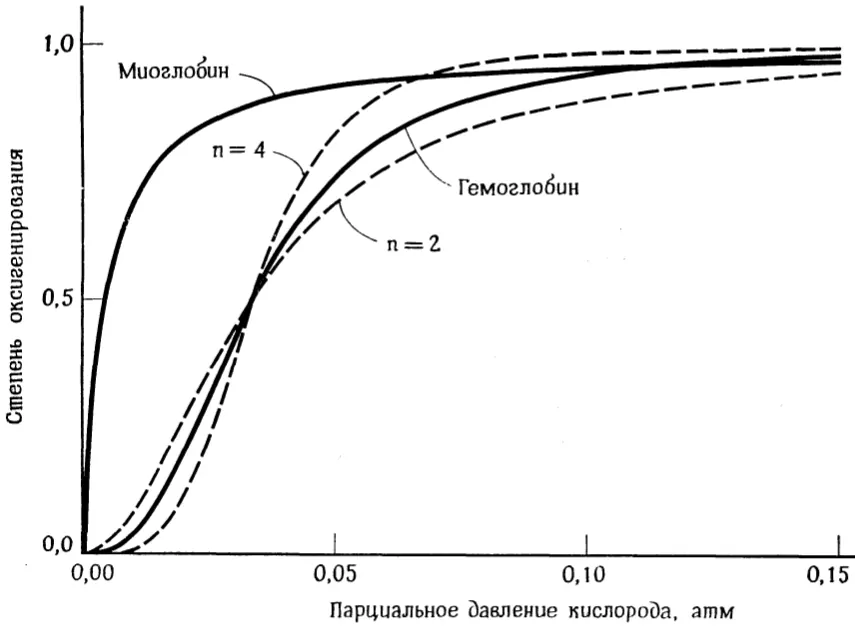
Рис. 15.12. Экспериментальные кривые (——) зависимости степени оксигенирования миоглобина и гемоглобина от парциального давления кислорода и теоретические кривые (– – –) для одновременного присоединения двух или четырех молекул кислорода (очень сильные гем-гем-взаимодействия).
Одно из возможных объяснений этого явления заключается в том, что в результате сильного взаимодействия между гем-группами промежуточные продукты в интервале между Hb4 и Hb4(O2)4 в заметных концентрациях не образуются (здесь Hb — субъединица гемоглобина с одной гем-группой). Равновесие для реакции
Hb4 + 4O2 ⇄ Hb4(O2)4
выражается уравнением
$$\frac{[\mathrm{Hb_4(O_2)_4}]}{[\mathrm{Hb_4}]} = K'\,p_{\mathrm{O_2}}^4.$$
Соответствующая этому отношению кривая приведена на рис. 15.12. Однако она не совпадает с экспериментальной кривой, и, следовательно, предположение об очень сильном гем-гем-взаимодействии ошибочно.
Другое простое объяснение заключается в допущении, что сильное взаимодействие между гем-группами осуществляется попарно, а сами пары не взаимодействуют между собой. Тогда соответствующее уравнение равновесия
$$\frac{[\mathrm{Hb_2(O_2)_2}]}{[\mathrm{Hb_2}]} = K''\,p_{\mathrm{O_2}}^2$$
дает кривую, также приведенную на рис. 15.12. Однако и эта кривая имеет менее выраженную S-образную форму, чем экспериментальная, и, следовательно, тоже не отражает реальный процесс.
Хорошее соответствие с экспериментом получается в том случае, если предположить, что гем-группа, присоединившая кислород (HbO2), повышает константу связывания кислорода в 12 раз на каждую соседнюю группу и что гем-группы расположены по углам квадрата. Фактор 12 согласуется с энергией взаимодействия между гем-группами: RT ln 12 = 6 кДж·моль−1.
В молекуле гемоглобина гем-группы расположены далеко друг от друга (3000 пм), поэтому прямого взаимодействия между ними недостаточно, чтобы объяснить это явление. Однако было найдено, что присоединение кислорода или другого лиганда изменяет форму свернутой полипептидной цепи и благодаря взаимодействию между соседними цепями этот эффект передается.
Первые данные, свидетельствующие о том, что лиганд, соединенный с гемом миоглобина или гемоглобина, втиснут в полость молекулы, были получены при изучении связывания гемом алкилизоцианидов (RNC, где R — этил, изопропил или трет-бутил). В ряду —CH2CH3, —CH(CH3)2 и —C(CH3)3 объем группы последовательно возрастает. Эти группы соединяются с железом гема, причем значения констант их связывания очень близки: так, прочность связи Fe—CNR не зависит от размера алкильной группы. Однако при соединении с железом гем-группы, находящейся в составе молекулы миоглобина или гемоглобина, значения констант связывания уменьшаются с увеличением размера алкильной группы (для каждой очередной метильной группы, замещающей водород, примерно в 14 раз). Это, вероятно, объясняется тем, что более крупные молекулы лиганда должны испытывать большие пространственные затруднения при достижении гема, расположенного в полости молекулы миоглобина, или одного из гемов в сложной молекуле гемоглобина. Такое внедрение лиганда через слишком узкую для него щель может осуществиться, если щель расширится в результате изменения структуры молекулы. О том, что такое изменение структуры молекулы происходит при оксигенировании гемоглобина, свидетельствует и тот факт, что кристаллы оксигенированной формы гемоглобина человека отличаются от кристаллов гемоглобина, не несущего кислорода (это справедливо и для гемоглобинов других биологических видов). Если бы при соединении гемоглобина с кислородом структура молекулы не изменялась, то и кристаллические формы были бы одинаковыми.
Четыре субъединицы гемоглобина удерживаются вместе в результате слабого взаимодействия между комплементарными поверхностями (см. разд. 15.5 и рис. 15.13, на котором показаны только две субъединицы из четырех). Комплементарность частично нарушается при связывании одной молекулы кислорода и снова восстанавливается при связывании второй молекулы кислорода. Различием в энергии взаимодействия между комплементарными поверхностями и объясняется более низкое значение константы связывания для первой молекулы кислорода и более высокое — для второй.
Этот механизм весьма выгоден для организма, так как он повышает кислородную емкость крови, доставляющей кислород от легких к тканям. В легких парциальное давление кислорода составляет около 0,15 атм, т. е. оно несколько ниже, чем во вдыхаемом воздухе. При таком давлении гемоглобин оксигенирован примерно на 95%; в тканях, где парциальное давление составляет около 0,04 атм, гемоглобин оксигенирован на 20%*. Таким образом, эффективная емкость гемоглобина составляет 75% от максимально возможной, в то время как для независимых гемов она равна только 32%.
Изменение конформации полипептидных цепей гемоглобина при связывании кислорода — пример так называемой аллостерии. Известны аллостерические формы и у других белков, преимущественно у ферментов. Аллостерия является механизмом, при помощи которого различные свойства большой белковой молекулы могут изменяться при ее соединении с малой молекулой. Для гемоглобина значение этого явления состоит в том, что оно связано с взаимодействием гемов между собой; характер этих взаимодействий и выражает S-образная кривая равновесия реакции гемоглобина с кислородом.
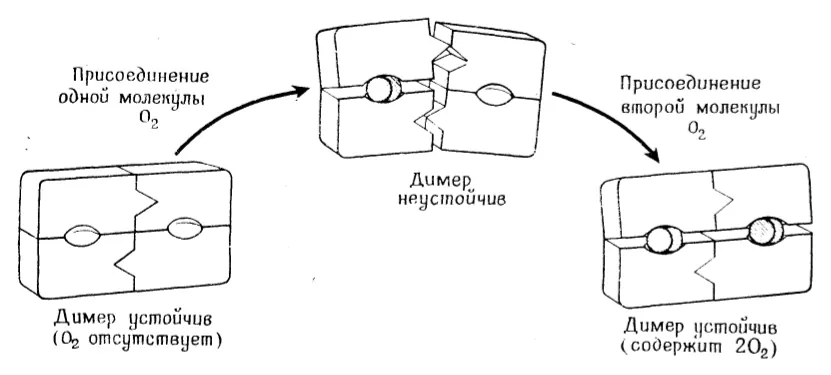
Рис. 15.13. Аллостерическое гем-гем-взаимодействие в димере.
* В действительности парциальное давление кислорода в тканях несколько выше 0,04 атм и освобождению кислорода гемоглобином способствует подкисление крови двуокисью углерода, поступающей из тканей.
Ферменты и другие глобулярные белки
Рентгеноструктурный анализ кристаллов позволил установить полную пространственную структуру ряда глобулярных белков. Было показано, что вторичная структура этих белков представлена главным образом α-спиралью и двумя типами складчатого слоя. При помощи рентгеноструктурного анализа можно установить и положение каталитически активного центра в молекуле фермента, соединенного с ингибитором.
Многие ферменты, катализирующие окислительно-восстановительные реакции, содержат атомы железа. Примером могут служить цитохромы, присутствующие в каждом живом организме. Они содержат гем-группы, связанные с белком иначе, чем в молекулах миоглобина и гемоглобина. Интересным является белок, содержащий негемовое железо (так называемый высокопотенциальный железосодержащий белок), выделенный из клеток нескольких видов пурпурных бактерий. Он может обратимо одноступенчато (путем потери одного электрона) окисляться ионом гексацианоферрат(III) кислоты [Fe(CN)6]3− и другими окислителями и, вероятно, катализирует какие-то окислительные процессы, важные для физиологии бактерий. На рисунке, где приведена пространственная структура этого белка (рис. 15.14), видны короткие участки α-спирали и пара участков с антипараллельными цепями типа складчатого слоя. В середине молекулы находится группа из четырех атомов железа (●) и восьми атомов серы (○). Четыре атома железа расположены в несмежных углах куба, а четыре атома серы несколько выдвинуты наружу от четырех других углов куба. Остальные четыре атома серы расположены радиально по отношению к атомам железа. Внешние атомы серы принадлежат цистеиновым остаткам, занимающим положения 43, 46, 63 и 77 в полипептидной цепи, состоящей из 85 аминокислотных остатков. Атомы водорода в каждой сульфгидрильной группе цистеина замещены железом. Взаимодействие атома Fe(III) в данной группе с окружающими атомами можно представить следующим образом: единственную ковалентную связь он образует с одним из смежных атомов серы цистеина, а на три других атома серы приходится по 2/3 связи (т. е. две ковалентные связи резонируют между тремя положениями). Подобное тетраэдрическое расположение четырех атомов серы вокруг атома железа обнаружено также у некоторых сульфидных минералов, например у халькопирита (CuFeS2).
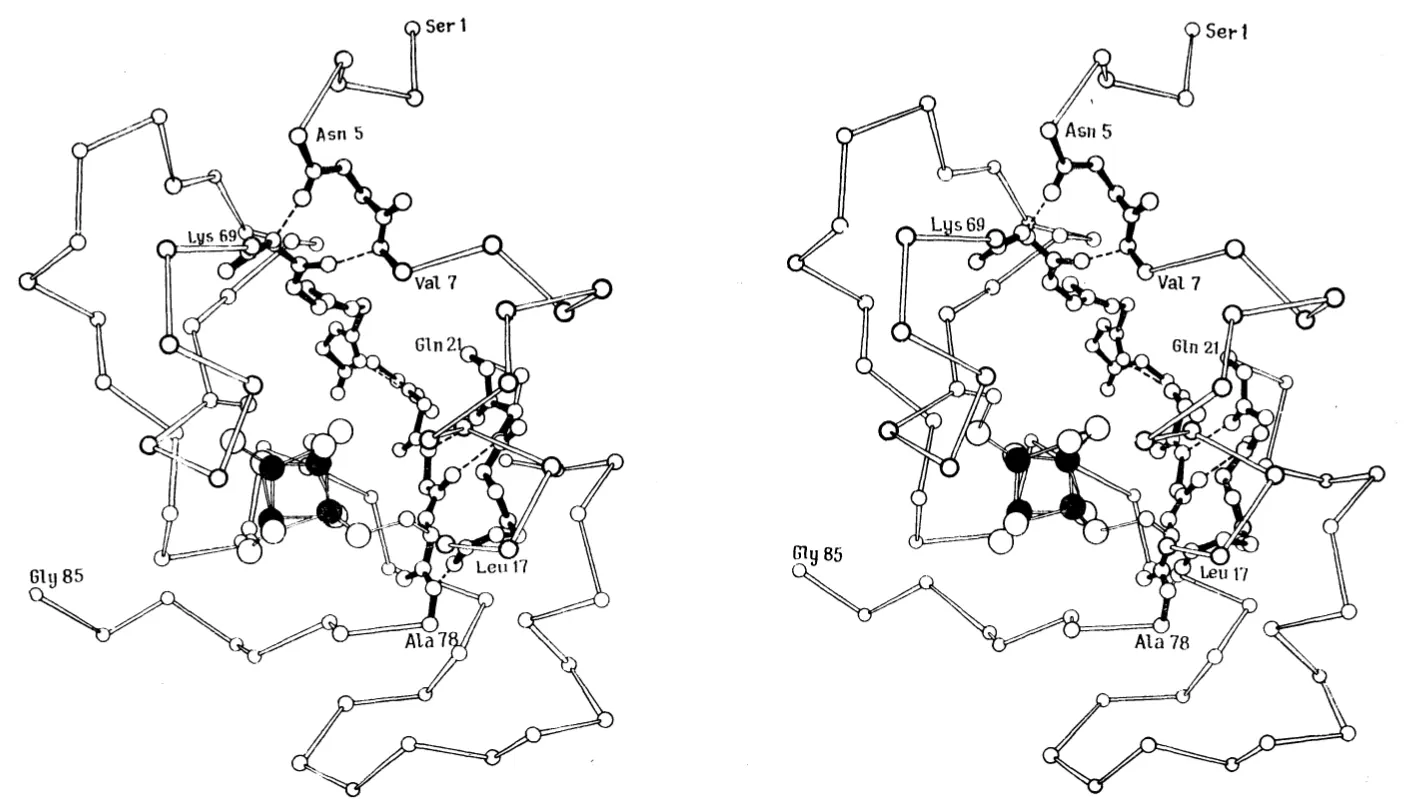
Рис. 15.14. Стереоскопическое изображение пространственного расположения α-атомов углерода 85 аминокислотных остатков и группы Fe4S8 в высокопотенциальном белке пурпурных бактерий.
[From Carter C. W., Jr., Kraut J., Freer S. T., Xuong N., Alden R. A., Bartsch R. G., J. Biolog. Chem., 249, 4212 (1974).]
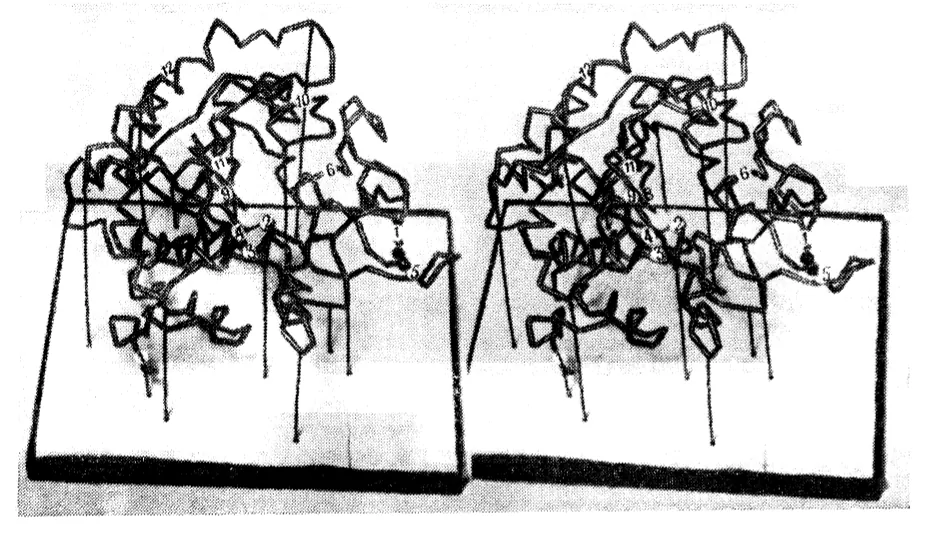
Рис. 15.15. Стереоскопическое изображение молекулы протеолитического фермента карбоксипептидазы А. Каждый отрезок соответствует аминокислотному остатку, заключенному между α-атомами углерода. Полипептидная цепь состоит из 307 остатков и содержит атом цинка (белый шар между цифрами 2 и 4).
[From Lipscomb W. N., et al., Structure, Function and Evolution in Proteins, Brookhaven Symposia in Biology, № 21 (1968).]
На рис. 15.15 приведена структура протеолитического фермента карбоксипептидазы А. Полипептидная цепь этого фермента образована 307 аминокислотными остатками и содержит один ион цинка. В цепи имеется несколько α-спиральных участков, а также несколько искривленных участков складчатого слоя (около центра молекулы). Каталитически активный центр фермента расположен рядом с атомом цинка. Пространственная структура части молекулы лизоцима (этот фермент, обнаруженный в слезах и яичном белке, защищает организм от инфекций, гидролизуя полисахариды клеточных стенок бактерий) вместе с молекулой субстрата приведена на рис. 15.16. Водородные связи, образующиеся между ферментом и молекулой субстрата, изменяют конформацию последней так, что понижается энергия активации реакции его гидролиза и субстрат расщепляется на две молекулы меньшего размера.
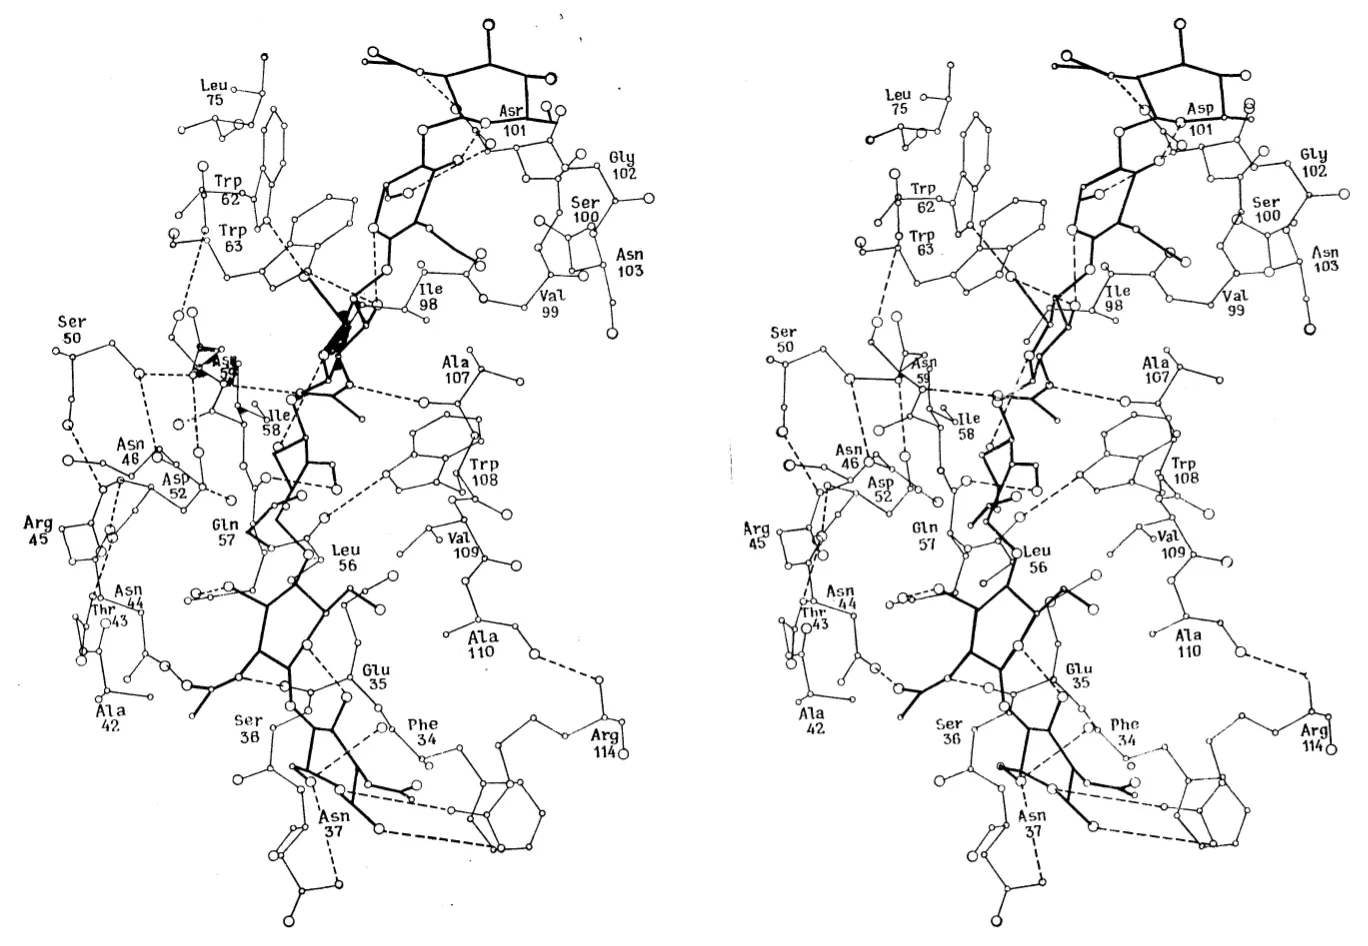
Рис. 15.16. Стереоскопическое изображение части полипептидной цепи фермента лизоцима и молекулы субстрата с шестью глюкозными кольцами; контактирующий участок молекулы субстрата деформирован водородными связями с ферментом. Расщепление молекулы субстрата происходит между третьим и четвертым кольцами.
[From Phillips D. C., professor, Oxford University.]