Лайнус Полінг, Пітер Полінг — Хімія
Одной из самых поразительных и интересных особенностей нашего мира является существование человека и других организмов, способных иметь потомство, которому они передают многие из своих признаков. Механизм, посредством которого ребенок развивается так, что становится похожим на своих родителей, усиленно изучали на протяжении сотни лет, однако прогресс в познании этого явления стал особенно заметен в последние 25 лет.
В 1866 г. аббат Грегор Мендель (1822—1884) предложил простую теорию передачи наследственных признаков, основанную на результатах опытов по скрещиванию двух сортов гороха, которые он проводил в саду августинского монастыря в Брюнне в Моравии (ныне Брно, Чехословакия). Он установил, что результаты опытов можно объяснить, если допустить, что каждое растение второго поколения получает от каждого из двух родительских растений некий задаток или фактор (называемый теперь геном), определяющий развитие одного наследственного признака. Согласно современным представлениям, гены линейно расположены в более крупных структурах — хромосомах, которые можно увидеть в ядрах клеток при помощи сильного микроскопа.
Различающиеся гены, которые в хромосоме могут занимать одинаковые участки, называются аллелями или аллеломорфными генами. Рассмотрим, например, опыты Менделя, который скрещивал два сорта гороха, у одного из которых семена были гладкими, у другого — морщинистыми. Гибриды первого поколения дали гладкие семена. Однако при самоопылении растений, выращенных из этих семян, у гибридов полученного таким путем второго поколения три четверти семян оказались гладкими и около одной четверти — морщинистыми. Результаты этих и многих аналогичных опытов Мендель объяснил тем, что растения одного родительского сорта несут два аллеля, ответственных за гладкую поверхность семян, а растения второго родительского сорта — два аллеля, ответственных за морщинистость семян. Гибриды между этими двумя сортами получают по одному аллелю от каждого из родителей, причем, как предположил Мендель, аллель гладкой формы семян является доминантным, а аллель морщинистой формы — рецессивным; это значит, что если гибрид обладает хотя бы одним доминантным аллелем, то все семена будут гладкими, так же как и в том случае, когда гибрид несет оба аллеля гладкой формы семян. В следующем поколении растений, полученном скрещиванием гибридов первого поколения, аллель гладкой формы семян и аллель морщинистой формы семян по закону случая передавались от одного и другого родителей. Можно, следовательно, было ожидать, что одна четвертая часть потомства будет иметь генетическую структуру RR (где R — доминантный аллель), половина потомства будет иметь генетическую структуру Rr или rR и одна четвертая часть — генетическую структуру rr (r — рецессивный аллель). Гибриды RR будут иметь гладкие семена, гетерозиготы Rr и rR (несущие разнокачественные аллели) будут также иметь гладкие семена, так как аллель R доминирует над аллелем r, а рецессивные гомозиготы rr (оба аллеля одинаковы) будут иметь морщинистые семена.
Теория гена стала плодотворно и быстро разрабатываться после 1910 г. в результате экспериментов с плодовой мушкой (Drosophila), осуществленных Томасом Гентом Морганом и его сотрудниками (особенно А. Г. Стертевантом, К. Бриджесом и Г. Дж. Мёллером), которым удалось определить порядок расположения многих генов в хромосомах этого организма. Дальнейшие успехи генетики связаны с работами исследователей (главным образом Дж. У. Бидла и Э. Л. Тейтема), которые использовали в качестве объекта красную хлебную плесень (Neurospora), а также Дж. Ледерберга и других, изучавших генетику бактерий.
Взаимосвязь между генами и молекулами белка можно проследить на примере разных форм гемоглобина, обнаруженных в эритроцитах человека. В 1949 г. было установлено, что у некоторых людей, страдающих серповидноклеточной анемией, эритроцит содержит форму гемоглобина (гемоглобин S), которая отличается от гемоглобина эритроцитов большинства людей (гемоглобин A). Различие этих форм невелико: две α-цепи молекулы гемоглобина S идентичны α-цепям молекулы гемоглобина A, а β-цепи различаются одним аминокислотным остатком. β-Цепь гемоглобина A имеет в шестом положении, считая от NH2-конца полипептидной цепи, остаток глутаминовой кислоты, в то время как β-цепь гемоглобина S имеет в этом положении остаток валина; все другие остатки аминокислот те же, что и в гемоглобине A.
Аномальный гемоглобин в эритроцитах больных серповидноклеточной анемией и является причиной этого очень серьезного заболевания. Экспериментально установлено, что у родителей человека, страдающего этой болезнью, в эритроцитах присутствует смесь 50% гемоглобина A и 50% гемоглобина S. В среднем четвертая часть потомства от таких браков будет гомозиготной по мутантному гену, определяющему синтез аномального гемоглобина (генотип SS), и будет страдать серповидноклеточной анемией. Очевидно, гены A и S выполняют свои функции совершенно независимо друг от друга: в случае гетерозиготных особей (генотип AS) каждый из генов определяет синтез гемоглобина своего типа и в результате каждый эритроцит содержит смесь гемоглобинов A и S.
Примерно 25 лет назад были получены данные, свидетельствующие о том, что ген представляет собой молекулу дезоксирибонуклеиновой кислоты (сокращенно ДНК). В настоящее время установлена химическая природа ДНК и известна ее молекулярная структура. Характер этой структуры позволяет понять в существенных чертах механизм удвоения (редупликации, или репликации) молекул ДНК, благодаря чему образовавшиеся молекулы-копии могут передаваться потомкам через половые клетки, а также попадают во все клетки при их делении в процессе роста организма. В результате каждая клетка получает один и тот же набор генов.
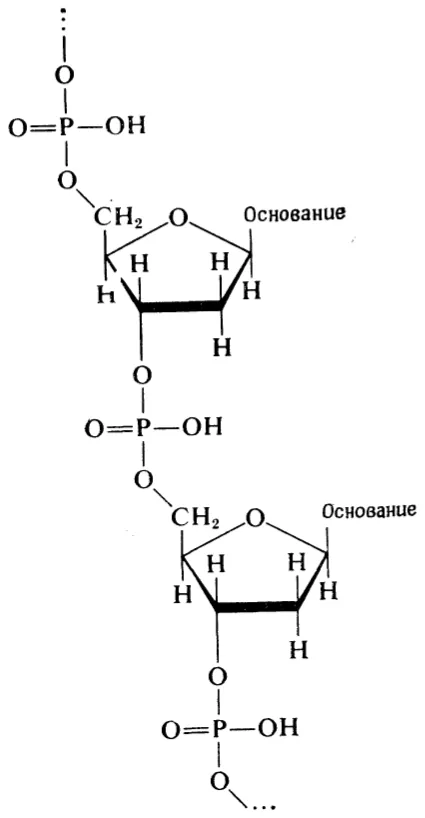
Молекула ДНК состоит из мономеров, называемых нуклеотидами, которые удерживаются вместе химическими связями в линейной последовательности, называемой полинуклеотидной цепью или молекулой нуклеиновой кислоты. Каждый нуклеотид состоит из трех составных частей: молекулы фосфорной кислоты, молекулы моносахарида дезоксирибозы (см. разд. 13.6) и молекулы азотсодержащего соединения, называемого азотистым основанием. Молекулы моносахарида и фосфорной кислоты конденсируются, образуя длинные полинуклеотидные цепи
Дезоксирибоза представляет собой пентозу (сахар, имеющий формулу C5H10O5), потерявшую один атом кислорода, после чего ее формула становится C5H10O4; структурная формула дезоксирибозы (разд. 13.6) имеет вид
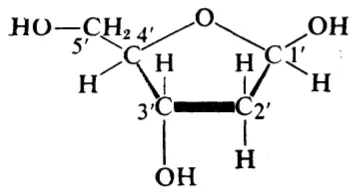
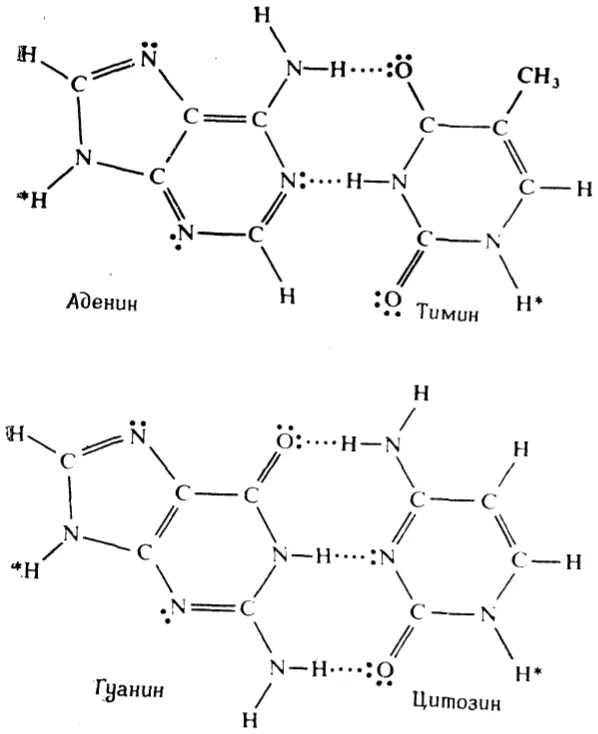
Рис. 15.20. Специфическое (по принципу комплементарности) образование водородных связей между аденином и тимином и между гуанином и цитозином.
Две гидроксильные группы, присоединенные к атомам углерода 3′ и 5′ дезоксирибозы, конденсируются с гидроксильными группами отдельных молекул фосфорной кислоты OP(OH)3, в результате чего и образуется углеводнофосфатный скелет ДНК. Атом азота, входящий в состав азотистого основания, замещает гидроксильную группу атома углерода 1′ дезоксирибозы.
Азотистые основания, обнаруженные в ДНК, представлены двумя пуриновыми основаниями — аденином и гуанином — и двумя пиримидиновыми основаниями — тимином и цитозином. В формулах, приведенных на рис. 15.20, звездочками отмечены атомы водорода, которые в ДНК замещаются атомом углерода кольца сахара; расположение двойных связей отвечает лишь одной из нескольких возможных валентных структур для каждой молекулы. Такие молекулы имеют плоскую конфигурацию, так как каждая из связей в пуриновых и пиримидиновых кольцах имеет характер частично двойной связи.
Химический анализ ДНК из ядер клеток показывает, что хотя относительное число молекул двух пуриновых оснований — аденина и гуанина — различно у разных биологических видов, молекулярное отношение аденин/тимин равно единице и отношение гуанин/цитозин также равно единице. Так, процентное содержание этих оснований в сперме человека следующее: 31% аденина, 19% гуанина, 31% тимина и 19% цитозина.
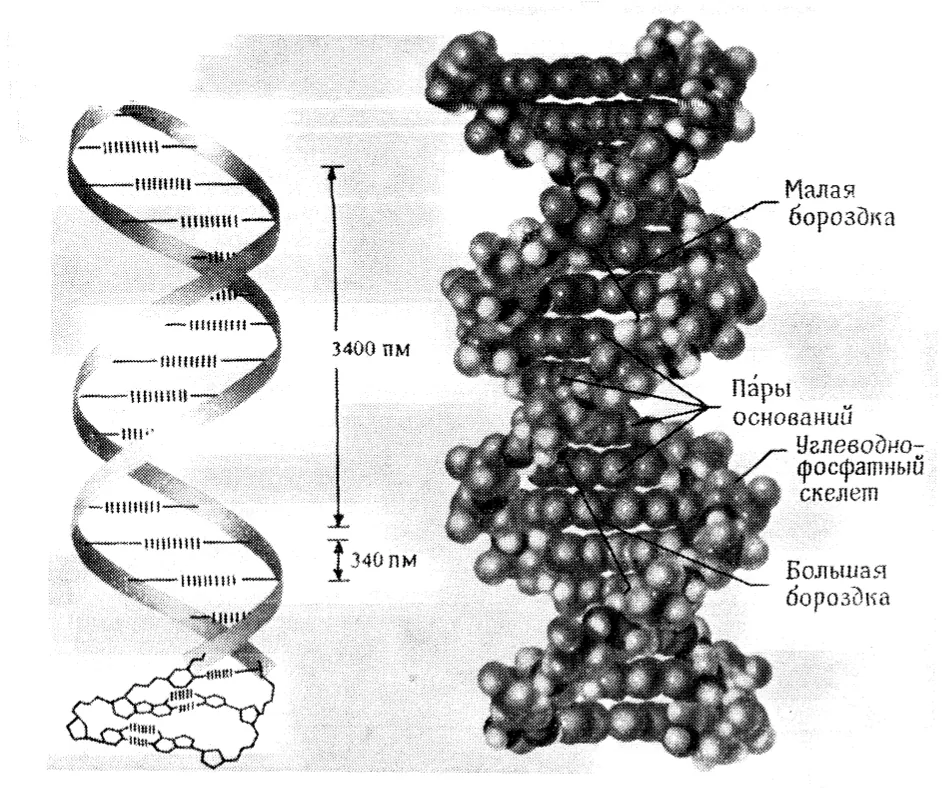
Рис. 15.21. Модель двойной спирали ДНК, предложенная Уотсоном и Криком.
Экспериментальные данные о химическом составе ДНК удалось интерпретировать лишь после того, как была теоретически обоснована ее структура. В 1953 г., воспользовавшись исключительно четкими дифракционными картинами ДНК, полученными М. Х. Ф. Уилкинсом, американский биолог Дж. Д. Уотсон и английский биофизик Ф. Х. К. Крик предположили, что молекулы ДНК состоят из двух цепей, закрученных относительно друг друга в виде спирали таким образом, что через каждые 330 пм вдоль оси такой двойной спирали расположены остаток аденина или гуанина и остаток тимина или цитозина. При этом такие остатки образуют комплементарные пары аденин-тимин и гуанин-цитозин (рис. 15.21). Спаривание оснований по принципу комплементарности пояснено на рис. 15.20, из которого видно, что между аденином и тимином могут образовываться две, а между цитозином и гуанином три водородные связи.
Согласно гипотезе Уотсона — Крика, четыре основания — аденин, тимин, гуанин и цитозин, обозначаемые соответственно буквами A, T, G и C, — расположены в определенной последовательности в одной из полинуклеотидных цепей в гене и в комплементарной последовательности в другой полинуклеотидной цепи. На каждом уровне находится одна из следующих четырех пар азотистых оснований: —A=T—, —T=A—, —G≡C—, —C≡G—. Двойные и тройные черточки обозначают две или три водородные связи, как показано на рис. 15.20.
Репликация ДНК
ДНК не только детерминирует образование других молекул, что будет описано ниже, но и копирует (реплицирует) сама себя. Уотсон и Крик постулировали следующий механизм удвоения молекул ДНК в процессе деления клетки: двойная спираль, состоящая из двух комплементарных полинуклеотидных цепей, раскручивается на отдельные цепи и одновременно начинается синтез новых полинуклеотидных цепей с участием ферментов в качестве катализаторов и исходных цепей ДНК в качестве матриц. Новая цепь, синтезирующаяся на одной из исходных цепей, идентична другой исходной цепи, в результате чего сохраняется комплементарность. Таким образом, когда процесс завершается, получаются две идентичные двойные спирали, каждая из которых состоит из одной исходной цепи и одной вновь синтезированной цепи (рис. 15.22).
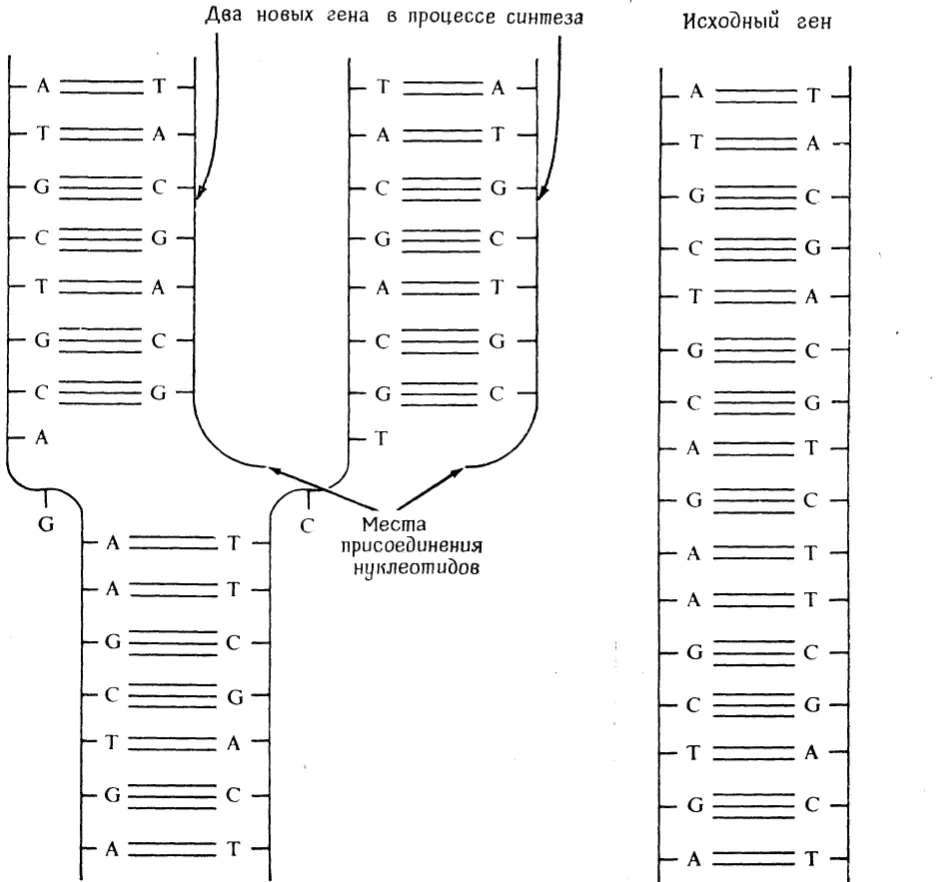
Рис. 15.22. Схема постулированного механизма репликации гена посредством синтеза двух новых полинуклеотидных цепей, комплементарных цепям исходного гена. Спиральная структура цепей на схеме не показана.
Этот процесс представляет собой наиболее удивительный и яркий пример более общего явления — достижения биологической специфичности путем взаимодействия комплементарных структур, аналогичных тем, которые обусловливают связывание антител и антигенов (разд. 15.5). Объединение пуриновых и пиримидиновых оснований в пары путем образования двух или трех водородных связей происходит в соответствии с принципом комплементарности. Взаимное положение оснований в углеводнофосфатном скелете ДНК таково, что только пуриновое основание одной цепи и пиримидиновое основание другой цепи могут образовать между собою водородную связь. В принципе возможны и неправильные пары — AC и GT. Однако, как видно из рис. 15.20, между A и C не могут образоваться водородные связи при заданном положении оснований в цепи ДНК. Между G и T могла бы возникнуть одна водородная связь, но в действительности «средние» атомы водорода (связанные с атомами азота колец как у G, так и у T) создают пространственные затруднения, которые удерживают G и T достаточно далеко друг от друга, препятствуя образованию такой связи. Энергия водородной связи составляет примерно 20 кДж·моль−1, и, следовательно, введение в строящуюся цепь правильного («разрешенного») пуринового или пиримидинового основания дает энергетический выигрыш в 40 или 60 кДж·моль−1.
Можно произвести приближенные, но тем не менее убедительные расчеты вероятности ошибки, которая может возникнуть в отдельном участке при синтезе полинуклеотидной цепи на комплементарной матричной цепи. Изменение энтропии, связанное с введением в строящуюся цепь неправильного нуклеотида, почти то же, что и в случае правильного, и соответственно различие в энергии Гиббса практически равно различию в энтальпии, т. е. составляет 40 кДж·моль−1 (или 60 кДж·моль−1). Используя представление о химическом равновесии для рассматриваемого процесса, можно записать
$$RT \ln (N^*/N) = \Delta G^\circ - \Delta G^{\circ *} = -40\ \text{кДж}\cdot\text{моль}^{-1}$$
Здесь ΔG° — изменение стандартной энергии Гиббса для реакции введения правильного нуклеотида в строящуюся цепь, ΔG°* — то же для неправильного нуклеотида, N — число правильных введенных нуклеотидов (при равновесии), N* — число неправильных нуклеотидов. Из уравнения следует
$$\ln (N^*/N) = \frac{-40\ \text{кДж}\cdot\text{моль}^{-1}}{RT} = -15{,}52,$$
$$N^*/N = 1{,}8 \times 10^{-7}.$$
Этот расчет сделан для пары A=T. Для пары G≡C отношение значительно меньше. Среднее значение для двух пар составляет 0,9·10−7, т. е. вероятность попадания в цепь неправильного нуклеотида — один случай из 107. Такой же результат получается при сравнении относительных скоростей двух реакций, если разность энергии активации для них равна 40 кДж·моль−1.
Ниже, при рассмотрении синтеза белка, будет отмечено, что ген, направляющий синтез одной из полипептидных цепей гемоглобина, включает около 500 пар оснований. Приведенный выше примерный расчет позволяет заключить, что вероятность ошибки при синтезе одного гена меньше, чем 1 из 20 000 (5·10−5). Экспериментально установлено, что фактически число ошибок гораздо меньше этой величины и составляет, по-видимому, только 1% от нее. Это объясняется тем, что в клетке существуют ферменты, которые обнаруживают ошибки и вырезают неправильный нуклеотид из полинуклеотидной цепи, а другие ферменты вводят в цепь правильный нуклеотид, исправляя таким образом ошибку.
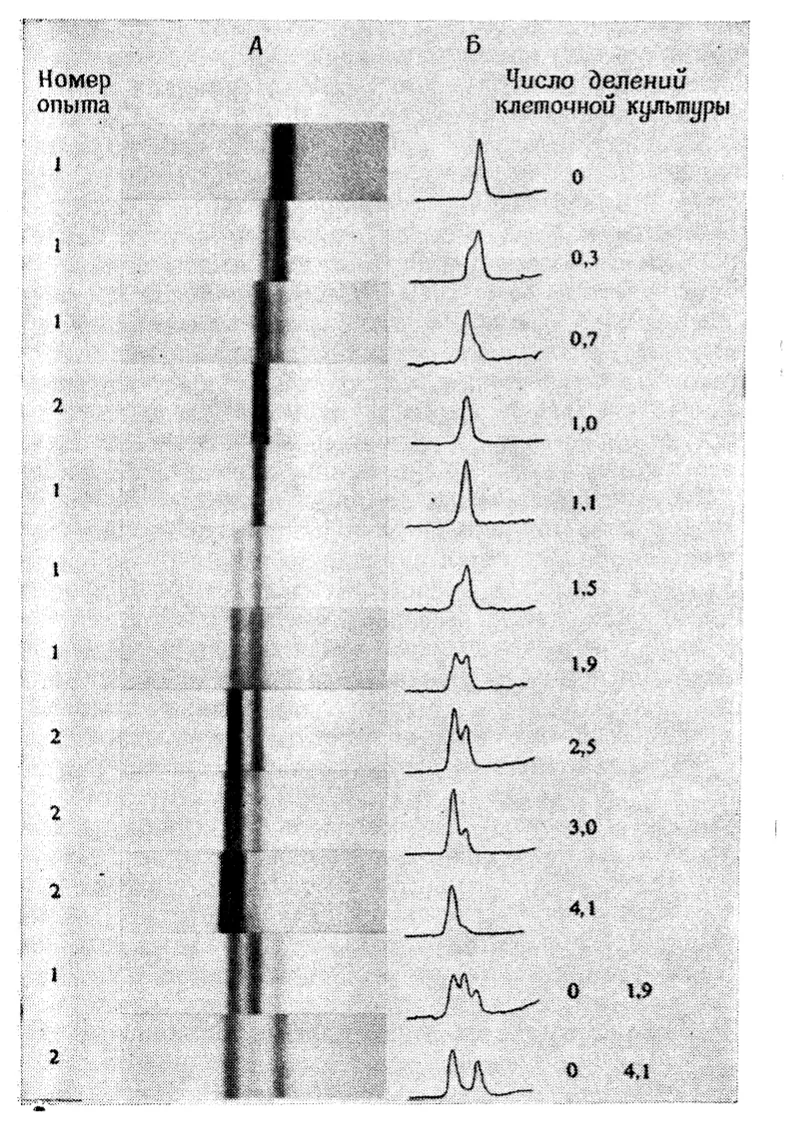
Рис. 15.23. Распределение ДНК при ультрацентрифугировании в градиенте плотности, полученное в экспериментах Мезельсона и Шталя.
В периферическом конце трубки осаждается ДНК с большей плотностью за счет присутствия в ней 15N. В первом поколении (после одного деления клеток в обычной среде с 14N) наблюдается ДНК, содержащая только половину исходного количества 15N.
[From Meselson M., Stahl F. W., Proceedings of the National Academy of Science, USA, 44, 675 (1957).]
Первое поколение дочерних молекул ДНК состоит наполовину из старых и наполовину из новых полинуклеотидных цепей. Это было подтверждено замечательным экспериментом на бактериальных культурах с использованием меченых атомов (15N; разд. 20.17). Об этом опыте в 1958 г. сообщили М. Мезельсон и Ф. У. Шталь. Они выращивали несколько поколений кишечной палочки (Escherichia coli) на питательной среде, в которой присутствовало соединение азота с высоким содержанием тяжелого изотопа 15N. Выделенная в этом случае бактериальная ДНК имела бо́льшую молекулярную массу (атомы в молекуле были те же) и бо́льшую плотность, чем ДНК, полученная из бактерий, выращенных на обычной среде. Различие плотности определяли методом, называемым ультрацентрифугированием в градиенте плотности. Раствор хлорида цезия помещают в центрифужную пробирку и вращают ротор с такой скоростью, чтобы получить центробежное ускорение, в 100 000 раз превышающее ускорение земного тяготения. В центробежном поле концентрация ионов цезия, имеющих высокую плотность (вместе с компенсирующими их заряд ионами хлора), будет выше в периферическом конце пробирки. Таким образом, по направлению к периферии в пробирке создается градиент плотности. Большие молекулы, вроде ДНК, при введении в пробирку и создании силового поля концентрируются в зонах, где их плотность равна плотности раствора хлорида цезия, т. е. в периферическом конце пробирки. Мезельсон и Шталь перенесли бактерии, выращенные в среде, обогащенной 15N, в обычную среду. После первого деления бактериальных клеток молекулы ДНК, извлеченные из них, давали в центрифужной пробирке промежуточную зону, расположенную между зонами с тяжелыми (15N) и нормальными (14N) молекулами (рис. 15.23). Кроме того, при соответствующей обработке молекулы ДНК могли расщепляться на две отдельные цепи и половина из них (как было показано также ультрацентрифугированием в градиенте плотности) состояла только из тяжелых цепей, другая — только из легких цепей. Таким образом, было доказано постулировавшееся положение о том, что первое поколение в потомстве ДНК содержит одну исходную цепь и одну вновь синтезированную цепь. После следующего (второго) клеточного деления половина молекул ДНК была смешанного типа, другая половина не содержала изотопа 15N.
Генетический код и синтез белков
Механизм синтеза белка включает перенос информации от одной из цепей спирали ДНК к молекуле рибонуклеиновой кислоты (РНК), которая комплементарна данной цепи ДНК. Молекула РНК содержит сахар рибозу
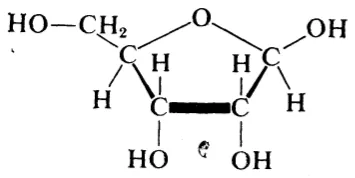
(вместо дезоксирибозы в ДНК) и пиримидиновое основание урацил (U) (вместо тимина).
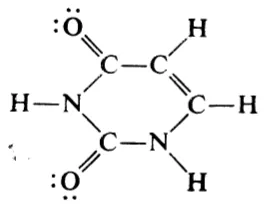
Способность урацила образовывать водородные связи (две связи с аденином) такая же, как и у тимина, от которого он отличается только тем, что вместо метильной группы содержит водород (см. рис. 15.20). Каждый ген (молекула ДНК) может служить матрицей для синтеза многих молекул матричной РНК. Любая такая молекула несет информацию, хранящуюся в гене. Эта информация затем используется (при помощи других молекул, в первую очередь определенных ферментов) при синтезе полипептидных цепей белков.
Установлено, что три нуклеотида выбирают аминокислоту для включения в полипептидную цепь; можно сказать, что ген представляет собой последовательность трехбуквенных слов (названных кодонами), составленных при помощи четырехбуквенного алфавита — A, T, G, C для ДНК и аналогично A, U, G, C для РНК. Таким образом, 146 кодонов, 438 букв (плюс несколько кодонов, служащих сигналами начала и прекращения синтеза) должны составлять ген, кодирующий синтез β-цепи гемоглобина, содержащей 146 аминокислотных остатков. Каждая молекула РНК производит сотни β-цепей; в зрелом эритроците имеется около 100 000 000 молекул гемоглобина.
Генетический код, по-видимому, универсален, т. е. единый для всех организмов. Такой код приведен в табл. 15.1. Этот код является вырожденным: для кодирования двадцати аминокислот четырехбуквенный алфавит дает возможность составить 64 трехбуквенных слова, и, таким образом, каждая аминокислота кодируется более чем одним кодоном. Вырожденность связана главным образом с третьей буквой кодона.
Описанный ниже эксперимент показывает, каким образом был расшифрован генетический код. Раствор ферментов, полученный из бактериальных клеток и добавленный к раствору, содержащему все 20 аминокислот, вызывает синтез полипептидной цепи, состоящей только из остатков аминокислоты фенилаланина, если к нему добавить синтетическую РНК, состоящую из полиурацила (т. е. последовательность U-U-U-U-...). Следовательно, кодоном для фенилаланина служит UUU, как показано в табл. 15.1. Основную работу по расшифровке генетического кода выполнили американские ученые М. У. Ниренберг, Х. Г. Корана и Р. Г. Холли со своими сотрудниками; при этом они использовали ферменты, открытые А. Корнбергом и С. Очоа.
Процесс синтеза полипептидных цепей приведен на рис. 15.24. В гене одна из двух полинуклеотидных цепей ДНК передает информацию комплементарной молекуле матричной РНК (мРНК). Рибосомы передвигаются вдоль этой мРНК и участвуют в присоединении следующих один за другим аминокислотных остатков к строящейся полипептидной цепи до тех пор, пока цепь не будет полностью синтезирована. В этом процессе участвуют молекулы транспортной РНК (тРНК), а также ферменты нескольких типов. Несколько рибосом могут одновременно перемещаться вдоль одной молекулы мРНК. За период жизни клетки один ген может производить несколько тысяч молекул мРНК, а каждая молекула мРНК может направлять синтез сотен молекул белка.
Таблица 15.1. Генетический код
| Первая буква | Вторая буква | Третья буква | |||
|---|---|---|---|---|---|
| U | C | A | G | ||
| U | UUU Phe | UCU Ser | UAU Tyr | UGU Cys | U |
| UUC Phe | UCC Ser | UAC Tyr | UGC Cys | C | |
| UUA Leu | UCA Ser | UAA * | UGA * | A | |
| UUG Leu | UCG Ser | UAG * | UGG Trp | G | |
| C | CUU Leu | CCU Pro | CAU His | CGU Arg | U |
| CUC Leu | CCC Pro | CAC His | CGC Arg | C | |
| CUA Leu | CCA Pro | CAA Gln | CGA Arg | A | |
| CUG Leu | CCG Pro | CAG Gln | CGG Arg | G | |
| A | AUU Ile | ACU Thr | AAU Asn | AGU Ser | U |
| AUC Ile | ACC Thr | AAC Asn | AGC Ser | C | |
| AUA Ile | ACA Thr | AAA Lys | AGA Arg | A | |
| AUG Met | ACG Thr | AAG Lys | AGG Arg | G | |
| G | GUU Val | GCU Ala | GAU Asp | GGU Gly | U |
| GUC Val | GCC Ala | GAC Asp | GGC Gly | C | |
| GUA Val | GCA Ala | GAA Glu | GGA Gly | A | |
| GUG Val | GCG Ala | GAG Glu | GGG Gly | G | |
* Служит сигналом для обрыва полипептидной цепи.
В каждой молекуле мРНК имеется цепь из нескольких сотен адениловых остатков (поли A), присоединенная к одному из ее концов. Было обнаружено, что эта цепь становится короче по мере того, как мРНК служит матрицей для все большего числа белковых цепей. По-видимому, каждая рибосома при движении вдоль мРНК отрезает один или два остатка A, а вероятнее, даже три. Этот процесс, возможно, служит механизмом, ограничивающим синтез белка, в результате чего в клетке не образуется избытка белка одного типа.
Рибосомы имеют молекулярную массу около 2,7·108 и состоят примерно на 65% из рибосомной РНК (рРНК) и на 35% из рибосомных белков. рРНК представлена молекулами двух типов — малой, с молекулярной массой около 500 000, и большой, с молекулярной массой примерно 1 000 000. Одна из них, по-видимому, участвует в прикреплении рибосомы к молекуле мРНК, другая — в связывании молекул тРНК.
Транспортная РНК (тРНК) имеет молекулярную массу около 25 000. Существует около сорока различных типов тРНК, приблизительно по два на каждую из двадцати аминокислот (вероятно, соответствующих двум или более кодонам, табл. 15.1). Молекула специфической тРНК присоединяется к определенной аминокислоте, особые ферменты (аминоацилсинтетазы) помогают тРНК узнавать свои аминокислоты. Аминокислота присоединяется к тРНК ковалентной связью своей карбоксильной группой. Эта связь высокоэнергетическая, и ее энергия способствует ускорению реакции присоединения аминокислотного остатка к строящейся полипептидной цепи. Процессы, происходящие в рибосомах при образовании полипептидных цепей, обеспечиваются энергией гидролиза молекул ГТФ (гуанозинтрифосфата, аналога АТФ, разд. 14.6).
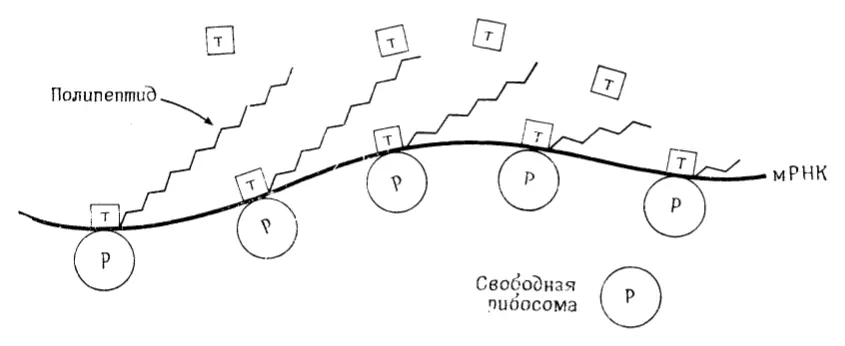
Рис. 15.24. Схема синтеза полипептидных цепей.
Длинная полужирная линия — молекула мРНК; ○ рибосомы, передвигающиеся вдоль мРНК; □ молекулы специфических тРНК доставляют соответствующие аминокислоты для строящейся полипептидной цепи.
Последовательность примерно 75 нуклеотидных остатков была определена для многих молекул различных тРНК. У всех у них обнаружены четыре одинаковых участка, образованных комплементарными парами A=U или G≡C, как показано на рис. 15.25. Существование этих участков позволило сделать вывод, что молекула имеет форму листа клевера, приведенную на рис. 15.25. Эта структура была подтверждена рентгеноструктурным анализом кристаллов дрожжевой фенилаланиновой тРНК (рис. 15.26).
Остатки, образующие петли (рис. 15.25), обнаружены у большинства молекул тРНК. По-видимому, некоторые из этих остатков образуют водородные связи с комплементарными остатками рРНК. В молекулах рРНК имеются взаимно комплементарные последовательности, свидетельствующие о том, что в них есть образованные водородными связями петли, аналогичные изображенным на рис. 15.25 и 15.26. Остатки, показанные в нижней части рис. 15.25, представляют собой кодон определенной аминокислоты. Отбор соответствующей тРНК включает образование водородных связей с комплементарной последовательностью в нити мРНК. После того как аминокислотный остаток присоединяется к строящейся полипептидной цепи, молекула тРНК освобождается, и рибосома передвигается к следующему кодону, к которому присоединяется соответствующая ему тРНК. Присоединение одного аминокислотного остатка к полипептидной цепи занимает около 0,05 с.
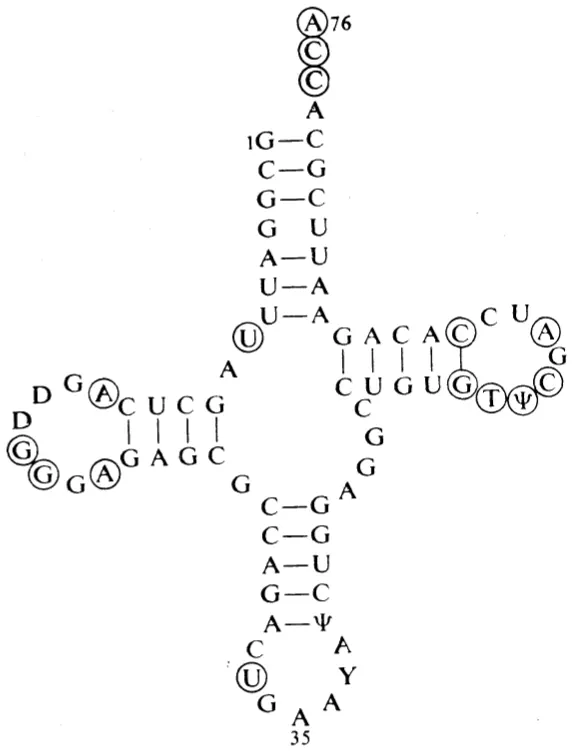
Рис. 15.25. Последовательность нуклеотидов в дрожжевой фенилаланиновой тРНК.
D, Ψ и Y — соответственно 4,5-дигидроуридин, псевдоуридин и диметилгуанозин.
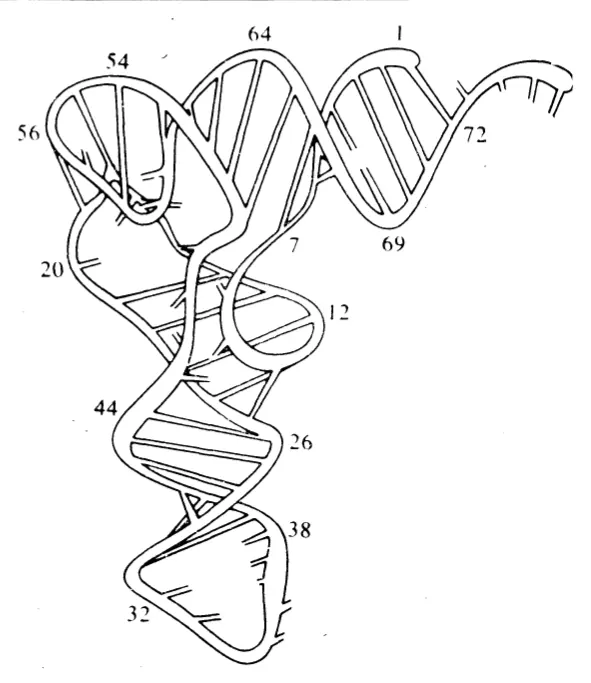
Рис. 15.26. Схема трехмерной структуры дрожжевой фенилаланиновой тРНК по данным рентгеноструктурного анализа.
Структура цепи, состоящей из 76 нуклеотидов, соединена водородными связями (прямые отрезки).
[From Kim S. H., Suddath F. L., Quigley G. J., MacPherson A., Sussman J. L., Wang A. H. J., Seeman N. C., Rich A., Science, 185, 435 (1974). © 1974 by the American Association for the Advancement of Science.]