Лайнус Полінг, Пітер Полінг — Хімія
Первичная структура белка, т. е. последовательность аминокислотных остатков в полипептидных цепях, уже обсуждалась в разд. 14.3. Термин вторичная структура используют для обозначения тех простейших способов, при помощи которых полипептидные цепи скручиваются или складываются в молекулах белков. Наиболее важные вторичные структуры — α-спираль и два вида структуры, которую называют структурой типа складчатого слоя. (Третичная структура включает вторичные структуры и те фрагменты полипептидной цепи, которые соединяют один участок вторичной структурой с другим; четвертичная структура — взаимное расположение субъединиц, состоящих из отдельных полипептидных цепей).
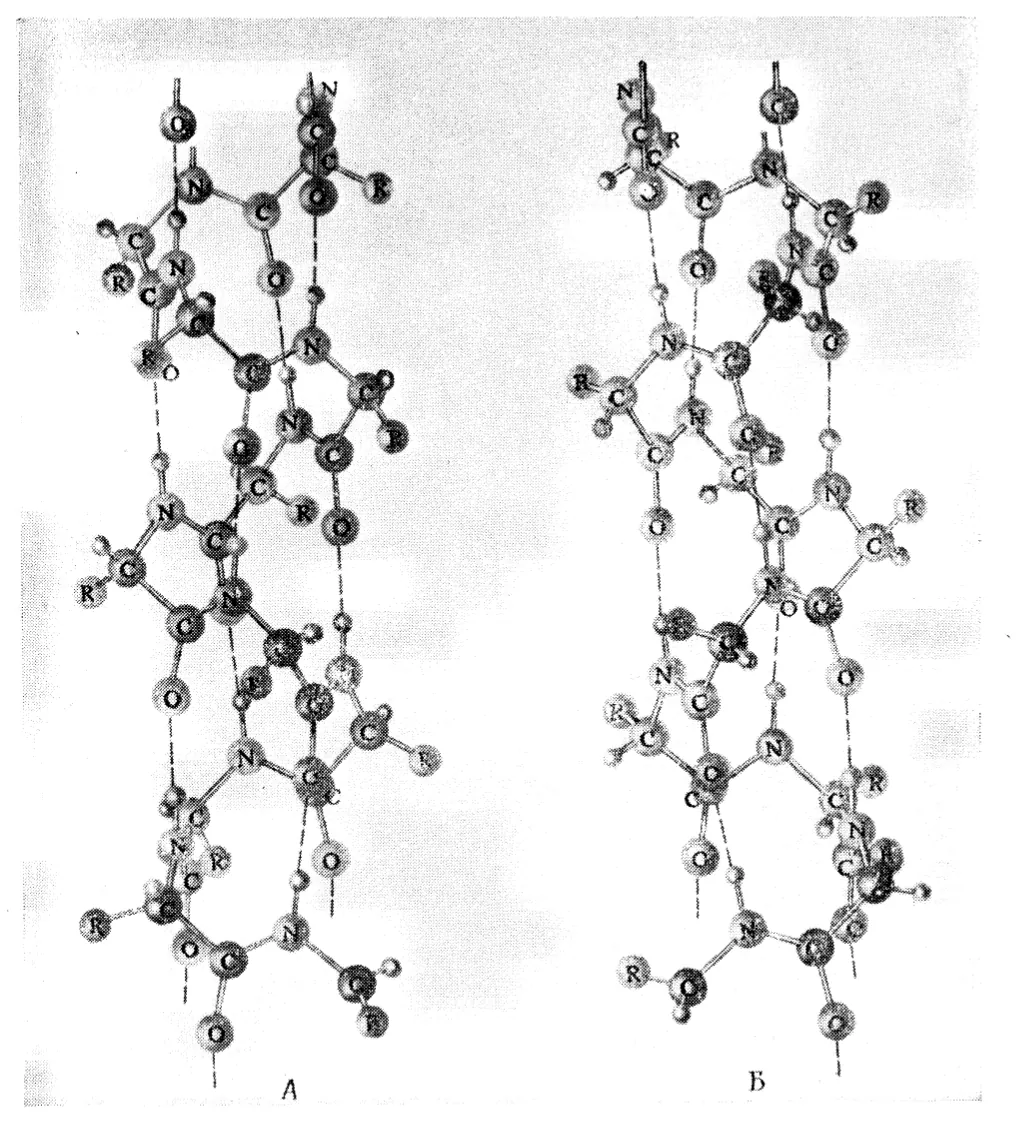
Рис. 15.1. Схематическое представление двух возможных форм α-спирали. А — левая спираль, Б — правая спираль. Для полипептидных цепей многих белков характерна конформация правой α-спирали. Во всех случаях аминокислотные остатки имеют L-конфигурацию. R — боковые группы или цепи различных аминокислотных остатков.
Представление о α-спирали и структурах типа складчатого слоя возникло не как вывод из прямых экспериментальных данных, полученных на белках, а скорее как теоретическое обобщение, основанное на изучении молекул более простых веществ. В аминокислотах один из атомов углерода, называемый α-атомом углерода (Cα), расположен между амино- и карбокси-группами. Когда аминокислоты соединяются между собой (с выделением воды) в пептиды или полипептиды, группы атомов, заключенные между двумя α-атомами углерода, располагаются следующим образом:
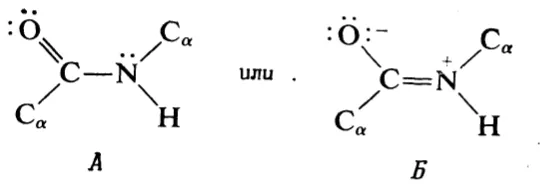
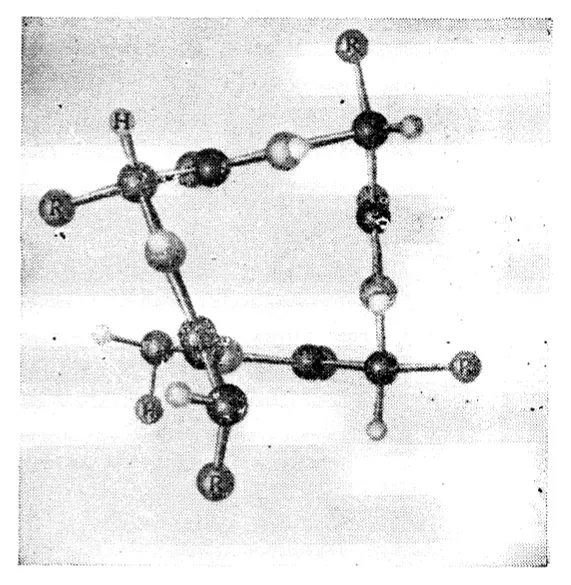
Рис. 15.2. Правая α-спираль. Вид сверху вдоль оси.
В этом случае имеет место резонанс между двумя валентными структурами, причем вклад в нормальновалентное состояние структуры А (обычная ковалентная структура) составляет примерно 60%, вклад структуры Б (структура с разделением зарядов) — около 40%. Вклад структуры Б с центральной двойной связью достаточно велик, чтобы удерживать группу из шести атомов почти в одной плоскости и уменьшить длину связи C—N от значения 147 пм, свойственного одинарной связи, до 132 пм. Такие плоские структурные единицы могут довольно свободно вращаться вокруг одинарных связей Cα—C и N—Cα. Сложность построения модели вторичной структуры в белках заключалась в необходимости учета того, что вращение структурных единиц не должно мешать образованию водородных связей N—H···O (длиной около 280 пм) между NH одной амидной группы и кислородом другой, расположенной дальше по цепи или в соседней цепи, и одновременно нарушение планарности амидных групп должно быть незначительным.
Несколько решений этой проблемы было предложено в 1950 г. В структуре типа α-спирали, приведенной на рис. 15.1 и 15.2, полипептидная цепь имеет конформацию спирали, водородные связи параллельны ее оси и связывают соседние витки между собой. На каждый виток такой спирали приходится примерно 3,6 аминокислотного остатка (18 остатков на 5 витков); шаг спирали (расстояние вдоль оси) равен 150 пм на остаток и соответственно 540 пм на виток.
Как было обнаружено, конформация типа α-спирали характерна для многих фибриллярных и глобулярных белков. В принципе α-спираль может быть как правой, так и левой, но в действительности в природных белках и синтетических полипептидах, образованных L-аминокислотами, была найдена только правая спираль. Это, возможно, объясняется тем, что в случае правой спирали обеспечивается большее пространство для крупных боковых цепей L-аминокислот.
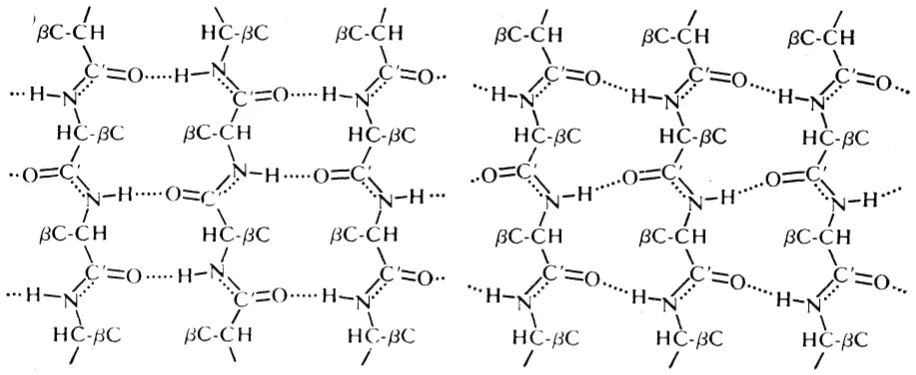
Рис. 15.3. Схематичное изображение антипараллельного (слева) и параллельного (справа) расположения полипептидных цепей в структуре типа складчатого слоя.
Как видно из рис. 15.3, в структурах типа складчатого слоя водородные связи, соединяющие соседние полипептидные цепи, расположены в одном слое. На этом рисунке цепи выглядят так, как будто их можно полностью вытянуть с сохранением расположения амидных групп в плоскости слоя. Однако путем расчета и построения модели было показано, что длины связей и их углы не допускают образования таких плоских слоев. Структуры, удовлетворяющие пространственным требованиям, можно получить при изгибании цепей у α-атома углерода, как это показано на рис. 15.4 и 15.5. Структуры типа складчатого слоя обнаружены в белках шелка, растянутых волосах и в глобулярных белках.